

陆生植物基因组中存在数目庞大的类受体激酶(RLK,Receptor‑Like Kinase)、类受体蛋白(RLP,Receptor‑Like Protein)家族,绝大多数成员功能仍然未知;尤其真菌细胞壁多糖类 MAMP 的受体挖掘,长期存在 “配体已知、受体未知” 的研究困境,壳聚糖的识别机制就是该领域最具代表性的科学缺口。转录组可以快速锁定病原特异性诱导表达的候选基因,大幅缩小候选基因池,为后续生化与遗传验证指明方向。
本次解读的这篇 Science 工作,正是依托转录组表达谱筛选锁定 DUF26 家族候选基因,结合互作组、体外生化实验、CRISPR‑Cas9 基因编辑、转基因遗传回补、大田抗病表型评价,完成从候选基因挖掘、受体生化鉴定、信号通路解析到农作物育种潜力评估的完整研究链条,是多组学驱动植物免疫受体发现的标杆案例。
基迪奥生物为本研究提供了转录组测序与分析服务。

研究背景:
几丁质(chitin)是真菌细胞壁重要组分,植物依靠 LysM(溶菌酶基序)类受体识别几丁质并激活免疫反应;但真菌可分泌几丁质脱乙酰酶,将几丁质转化为壳聚糖(chitosan),实现对几丁质触发免疫的逃逸。壳聚糖已在农业中广泛用作广谱免疫激发子,但植物识别壳聚糖的特异性受体一直未被鉴定,是植物‑真菌互作领域亟待填补的关键科学缺口;解析壳聚糖识别的分子机制,对培育持久广谱抗病农作物具备重要应用价值。
研究结果:

一、
OsFID1 正向调控水稻广谱真菌抗性,病害胁迫环境下显著改善水稻产量表现
研究人员利用转录组数据分析水稻 71 个 DUF26 家族基因在稻瘟菌、稻曲菌、白叶枯菌侵染后的表达模式,筛选得到受两类真菌显著诱导、却不受白叶枯菌诱导的 OsFID1 基因。亚细胞定位结合质外体蛋白提取免疫印迹证实 OsFID1 定位于质外体(apoplast),该蛋白无跨膜结构域和胞内激酶结构域。
借助 CRISPR‑Cas9 构建 OsFID1 敲除突变体 OsFID1 以及 OE‑OsFID1 过表达株系开展体内功能验证。结果显示,相较于野生型日本晴(NIP),OsFID1 对多株系稻瘟菌、稻曲菌感病程度显著上升,OE‑OsFID1 真菌抗性显著提升;而针对白叶枯、细菌性条斑病等细菌病害,突变体、过表达株系与野生型无显著差异,证明 OsFID1 特异性介导抗真菌免疫,不参与细菌抗性应答。
体外抑菌实验表明,纯化重组 OsFID1 蛋白不能直接抑制稻瘟菌菌丝生长,排除 OsFID1 的直接抑菌作用,确定 OsFID1 通过激活水稻宿主内部免疫信号通路实现抗病效果。
农艺性状调查表明:无病害正常栽培条件下,OE‑OsFID1 株系分蘖数、产量小幅下降,OsFID1 株系分蘖与产量小幅上升;但在病害高发的自然稻瘟病苗圃田间,OE‑OsFID1 产量较野生型提升 41.6%,OsFID1 产量较野生型下降 43.3%,证明 OsFID1 具备水稻抗病育种应用潜力。
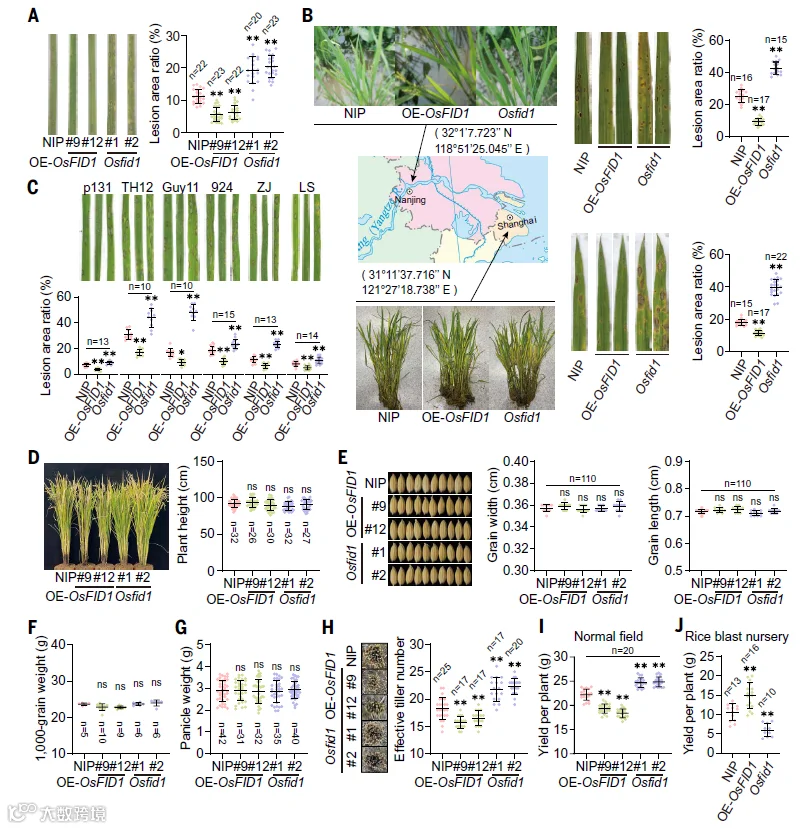
图1 OsFID1 调控稻瘟病抗性以及水稻农艺性状
二、
OsFID1 特异性识别聚合度 dp4‑dp7 长链壳聚糖寡糖,是壳聚糖诱导全套 PTI 免疫应答的必需基因
综合 MST(微量热泳动)、BLI(生物层干涉)、CETSA(细胞热位移)三类体外生化互作技术检测 OsFID1 配体结合谱,证实 OsFID1 特异性结合壳聚糖,不识别几丁质、植物细胞壁多糖、flg22 等其他 PAMP 分子,证明 OsFID1 是壳聚糖直接结合蛋白。
BLI、ITC(等温滴定量热)、FIDA(流动诱导分散分析)多手段联合证明:OsFID1 仅识别 dp4‑dp7 长链壳聚糖寡糖,不识别 dp2、dp3 短链壳聚糖寡糖。分子对接与定点突变证实蛋白 Arg⁸¹ 精氨酸残基是识别壳聚糖寡糖的关键位点;该位点突变后,蛋白完全丧失壳聚糖结合活性。
体内遗传实验证实,壳聚糖处理诱导的 MAPK(丝裂原活化蛋白激酶)磷酸化激活、ROS(活性氧)爆发、胼胝质沉积、水杨酸(SA,包含游离 SA 与 SA‑葡萄糖苷 SAG)积累等典型 PTI 免疫反应均高度依赖 OsFID1。转录组分析显示,壳聚糖处理后大量防御相关差异基因的表达受 OsFID1 调控;KEGG 富集表明差异基因显著富集于次生代谢物生物合成、MAPK 免疫信号通路等抗病通路,从转录层面解释 OsFID1 调控下游免疫输出的分子基础。
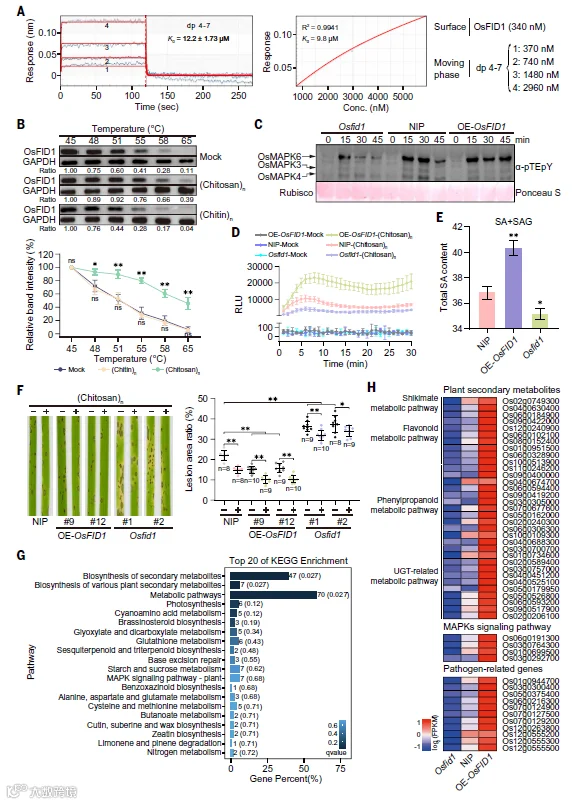
图2 OsFID1 结合壳聚糖并介导壳聚糖触发的植物免疫
三、
OsFID2 作为必需共受体,与 OsFID1 形成配体依赖性受体复合体;OsFID2 激酶域磷酸化与激酶活性是免疫激活不可或缺的条件
OsFID1 缺少跨膜与胞内激酶结构域,无法独立完成胞外信号向胞内转导。研究人员利用 IP‑MS(免疫沉淀‑质谱)互作组筛选得到质膜定位 DUF26 类受体激酶 OsFID2。BiFC(双分子荧光互补)、Split‑Luc(分裂荧光素酶)、GST‑pull‑down、Co‑IP(免疫共沉淀)、BLI 多套独立蛋白互作实验一致证实:壳聚糖可以浓度依赖性促进 OsFID1 与 OsFID2ETD (胞外‑跨膜结构域)发生直接物理互作。
OsFID2 敲除突变体中,壳聚糖诱导的 ROS 爆发、MAPK 激活等 PTI 反应显著减弱,稻瘟病抗性下降;在 OsFID2 背景过表达 OsFID1,无法恢复壳聚糖诱导免疫反应与稻瘟病抗性,遗传学证据证明 OsFID2 是 OsFID1 介导免疫通路不可缺少的共受体。
对 OsFID1 的 DUF26 结构域 6 个保守半胱氨酸做丙氨酸突变得到 OsFIDC6A,突变蛋白丧失与 OsFID2 的互作能力;将突变基因回补 OsFID1,不能恢复壳聚糖触发 MAPK 激活与真菌抗性。说明 DUF26 保守半胱氨酸通过维持蛋白高级构象,保障受体复合体组装与下游免疫信号输出。
构建 OsFID2 激酶域四重磷酸化位点突变体 OsFID24M、ATP 结合位点失活突变 OsFID2K398A;体外激酶、本氏烟瞬时实验证明两类突变体丧失激酶活性。分别将野生型 OsFID2 与 OsFID24M 回补 OsFID2,仅野生型 OsFID2 能够恢复壳聚糖诱导免疫和稻瘟病抗性,证实 OsFID2 激酶活性与磷酸化修饰是壳聚糖触发免疫的关键分子开关。
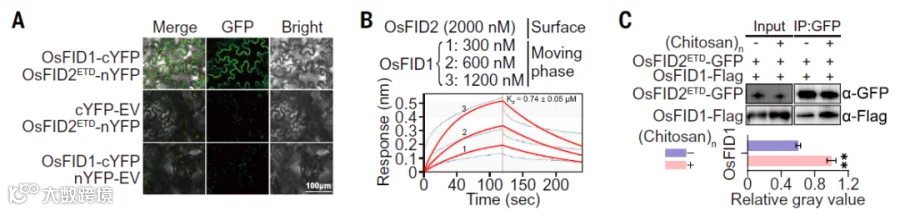
图3 OsFID1 与 OsFID2 蛋白相互作用验证
四、
FID1 介导的壳聚糖感知通路在被子植物中功能保守,异源功能表达存在物种蛋白兼容性限制
系统进化分析显示 FID1 同源基因广泛分布于单子叶、双子叶陆生植物。MST 体外配体结合实验表明,多数被子植物 FID1 同源蛋白具备壳聚糖结合活性;但苔藓小立碗藓(Physcomitrium patens)同源蛋白没有壳聚糖结合活性。
小麦 Fielder 背景异源过表达水稻 OsFID1,转基因小麦白粉病抗性提升,株高、分蘖数、千粒重等农艺性状无显著负效应;玉米 B73 背景下,异源表达 OsFID1或过表达玉米内源有壳聚糖结合活性的 ZmFID1b,均可增强禾谷镰孢穗腐病抗性;ZmFID1b 突变体穗腐病抗性显著降低。
该研究揭示重要物种兼容性现象:拟南芥中异源过表达水稻 OsFID1 不能增强灰霉病抗性;但过表达拟南芥内源 AtFID1 可提升灰霉病抗性,AtFID1 突变体抗病性下降。说明跨物种基因工程改良时,简单异位表达异源 FID1 不一定生效,需要宿主物种自身同源蛋白才能够完整激活下游免疫通路。
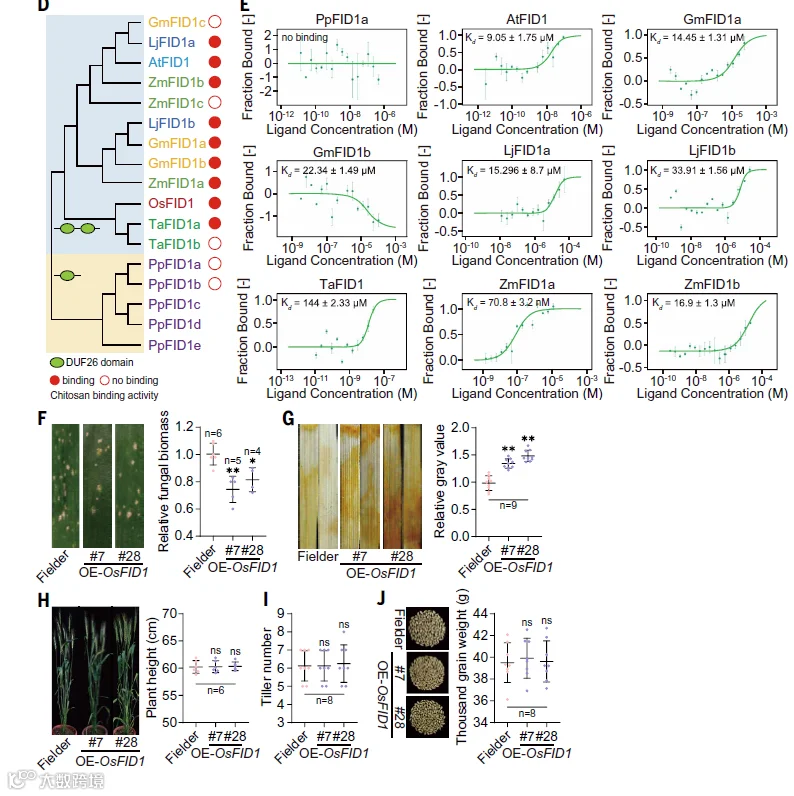
图4 FID1 家族进化保守性以及 OsFID1 在小麦中的异源功能验证

五、
壳聚糖感知完整分子工作模型构建
综合全部生化、遗传证据,文章提出壳聚糖感知工作模型:真菌侵染过程中分泌几丁质脱乙酰酶,将细胞壁几丁质修饰为壳聚糖并释放到植物质外体;质外体分泌蛋白 OsFID1 特异性识别 dp4‑dp7 长链壳聚糖寡糖;配体结合驱动 OsFID1 与质膜受体激酶 OsFID2 组装功能受体复合体;OsFID2 胞内激酶域发生磷酸化,向胞内传递免疫信号;最终激活 MAPK 磷酸化、ROS 爆发、次生代谢合成等 PTI 输出,实现广谱抗真菌效果。
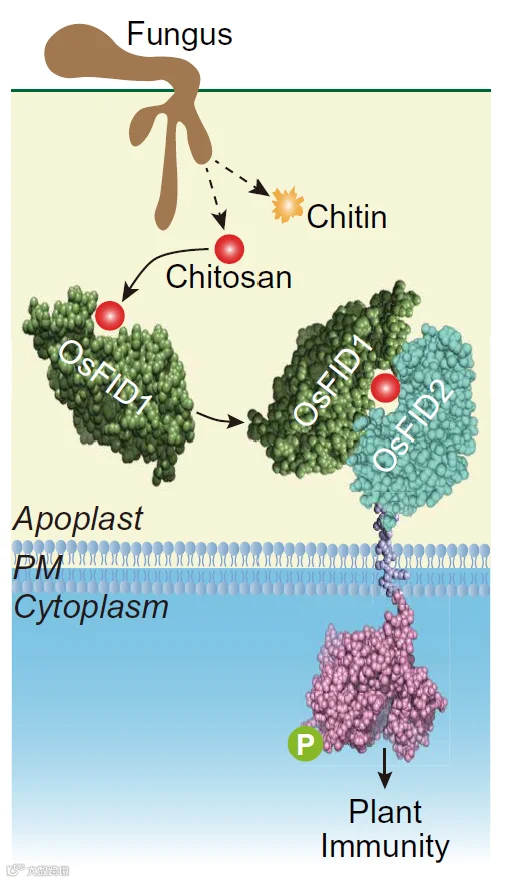
图5 OsFID1‑OsFID2 受体复合体介导壳聚糖感知的工作模型
小结:
该研究解决植物免疫领域长期悬而未决的科学问题,鉴定植物识别壳聚糖的受体模块 OsFID1‑OsFID2,该模块独立于经典 LysM 几丁质识别通路;拓展 DUF26 家族蛋白功能认知,解释了真菌利用几丁质脱乙酰酶逃逸几丁质免疫后,植物的监视识别机制。
整套工作完成转录组候选基因筛选→多类型体外生化互作→多体系蛋白互作验证→基因编辑、转基因遗传回补→大田病害与农艺评价的完整闭环,为植物 “孤儿 PRR”(配体已知、受体未知)的挖掘提供一套可借鉴的完整研究范式。
面向植物抗病领域未来发展,转录组已经不再局限于简单的差异基因筛选,正向着时间序列转录组、互作转录组、单细胞转录组、空间转录组纵深发展;与蛋白组、代谢组、互作组联合形成多组学整合体系,将持续助力大量孤儿 PRR 受体、新型免疫调控枢纽的挖掘解析。
基迪奥生物生物长期深耕植物高通量转录组技术服务,积累了水稻、小麦、玉米等主粮作物与(非)模式植物的大量实战项目经验,充分理解植物‑病原互作课题的实验设计逻辑。
如果有项目需求,欢迎联系我们,一起冲击顶刊。
*未经许可,不得以任何方式复制或抄袭本篇文章之部分或全部内容。版权所有,侵权必究。


分享科研绘图技能与工具
欢迎关注与转发~
你的好友拍了拍你
并请你帮她点一下“分享”~
#转录组#壳聚糖识别机制#OsFID1基因#文献解读