

从 5000 条 AI 序列到 6.7 nM:这条MC4R 环肽有多“从头设计”?
一篇很适合讨论“计算设计”和“药物工程”各自贡献了什么的论文
一条由计算方法给出的环肽,在细胞实验中激活 MC4R;研究者再测一千多个变体,把效力从 340 nM 提高到 6.7 nM;最后把优化后的肽直接注射到小鼠脑室,急性摄食量随之下降。
bioRxiv 在 2026 年发布的预印本 De novo designed cyclic MC4R peptide agonist reduces food intake in mice。只看结果,比许多停在结构自洽分数或一次体外结合实验的设计论文走得更远。但它也把几个长期容易混在一起的问题放到了同一张桌面上:什么叫 de novo,首个 hit 有多少来自模型,后续效力有多少来自实验搜索,新的序列是否代表新的结合方式,以及小鼠少吃能否归因于 MC4R。
这篇工作的价值不在于给这些问题一个简单答案,而在于它提供了一条很具体的设计流程,让我们可以逐段拆开来看。
论文做了什么
作者以人 MC4R 的结构为靶标,使用基于 AlphaFold2 的 ColabDesign hallucination 流程,生成约 1200 条线性肽和 3803 条头尾环化肽。设计结果按 pLDDT 与 ipTM 的乘积排序,最终选择 189 条线性肽和 184 条环肽进入合成;成功合成的 de novo 候选分别为 187 条和 176 条。
首轮采用 CHO-K1 细胞中的 cAMP 功能实验。作者报告,线性肽中有 74% 出现可测的激动或拮抗活性,环肽中这一比例为 23%。最好的环肽起点是一条 16 肽:
APWREAYGLKTTNRWF
纯化后,它激活 hMC4R 的 EC50 为 340 nM。随后,作者围绕这条序列测试了 835 个 DMS 变体、173 个半衰期延长基团(HLE)连接变体和 181 个组合变体。将第 5 位谷氨酸换成脯氨酸得到 E5P 后,EC50 降至 6.7 nM,约提高 51 倍。
最后,研究者给禁食 6 小时的雄性小鼠脑室注射 10 nmol E5P。每组 8 只,小鼠在给药后 1 小时的累积摄食量约下降 34%,4 小时约下降 23%,8 小时仍有统计学差异;饮水量也下降,活动量没有显著变化。
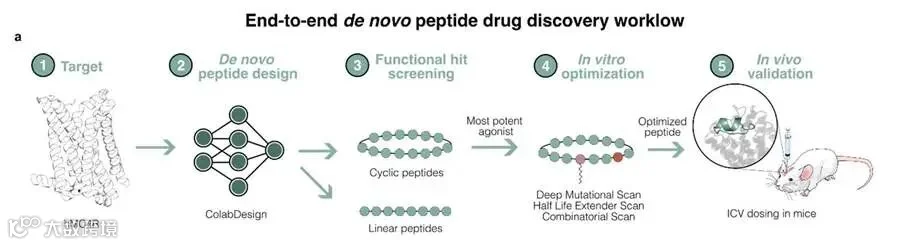
图1|论文的设计、筛选、实验成熟与小鼠验证流程。
MC4R 是合适的作为AI de novo验证的靶点吗
MC4R 并不是一个缺少生物学知识的靶点。α-MSH、β-MSH、γ-MSH 和 ACTH 都可以提供天然配体信息,HFRW 是长期研究的经典 melanocortin 药效片段。围绕这一通路,已经有研究者已经做过大量线性肽、环肽、拟肽和小分子 SAR;setmelanotide 也已经作为 MC4R 激动剂获批用于特定遗传或获得性肥胖适应证。MC4R 还有多套拮抗剂或激动剂复合物结构,以及成熟的 cAMP assay 和清楚的摄食表型。
从方法验证的角度,这些条件反而很有用。如果要判断一条计算生成的肽能否从结构设计走到细胞功能和动物表型,MC4R 提供了较低的实验不确定性。 assay 失败时,研究者较容易区分是分子不工作,还是实验体系根本没有建立好。它更像一个带有丰富参照系的正向基准,而不是一个糟糕的靶点。
从外推角度来说感觉是不够让人信服的。MC4R 的正构口袋、关键残基、激活通路和肽类配体都已有大量知识,这次成功不能直接说明同样的流程能处理没有天然配体、没有活性态结构或功能 assay 很不稳定的 GPCR。论文把流程称为receptor-agnostic,目前仍是一个需要跨靶点实验验证的设想。
因此,这项工作的目标应该更窄(也就是说我为标题党,通过标题吸引人阅读):它说明计算设计有机会在成熟 GPCR 上给出一个不同于已知天然肽序列的功能起点;它没有测到困难靶点上的普适设计能力。
从头设计粗糙来说可以分成三层
第一层是序列起点。作者没有拿 α-MSH 或 setmelanotide 逐位改造,也没有把 HFRW 设成固定 motif。初始hit 不含连续的 HFRW,16 个残基的整体序列也明显不同于论文列出的已知 melanocortin 肽。在这个意义上,把它称为 de novo 序列起点是合理的。
第二层是药理和结构先验。这里远不是没有参考。作者明确指定 MC4R 正构口袋,人工选择热点残基,输入的是一个已有配体塑造过的受体结构,再用AlphaFold2 学到的蛋白几何先验优化序列。深度学习模型的设计能力本来就来自学习;de novo 从不等于没有知识。更合适的说法是:没有直接从已知配体序列出发,但使用了很强的靶点结构和模型先验。
第三层是机制新颖性。论文把 APWR 称为 HFRW 之外的替代激活 motif,并用预测结构说明它在口袋中采取不同方向。DMS 也支持 APWR 的功能重要性:第 1—4 位大多数替换都会显著损失活性。可是,这些数据只能说明这一段序列重要,还不能单独证明一个新的受体激活机制。不同序列可能以不同骨架呈现相似的芳香和正电相互作用,也可能触发相同的 MC4R 微开关。
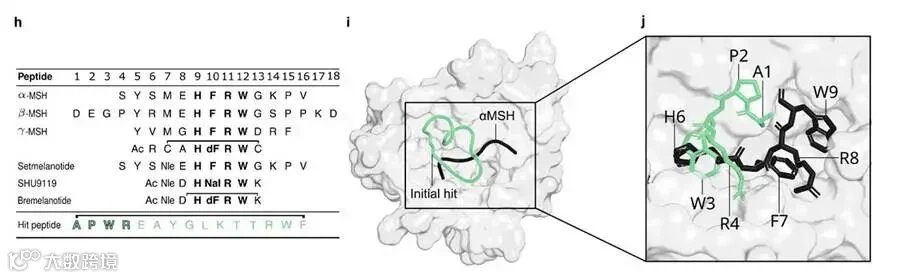
图2|作者已经把初始 hit 与多种已知 MC4R 肽作了序列比较,并将预测姿态与α-MSH 复合物叠合。绿色 hit 不含连续 HFRW,但保留了Trp 和 Arg,并以 APWR 形成反向的 WR 排列。
因此需要作准确描述:论文并非没有比较已知配体。Figure 1 列出了 α/β/γ-MSH、setmelanotide、SHU9119 和 bremelanotide,也把预测 hit 与 α-MSH 的受体结合姿态进行了叠合。未完成的是更系统的检索:没有公开全部已知 MC4R 肽、专利序列或三维药效团的相似性结果,也没有 hit-MC4R 的实验复合物结构。论文数据也没有公开设计坐标,外部读者难以自行做广泛的结构比对。
因此,当前比较稳妥的说法是获得了新的序列 scaffold 和一个不同于连续 HFRW 的 APWR 功能片段。新的结合模式还需要冷冻电镜、晶体结构、交联质谱,或配体—受体成对突变等实验来确认。
6W25 作为结构起点的意义
作者选择 PDB 6W25 作为受体输入,理由是 GPCRdb 将其标为 intermediate state,希望减少对单一端态的偏向。这个选择很有意思,但也值得继续追问。
6W25 是 SHU9119 环肽拮抗剂结合的人 MC4R 晶体结构。一些后续结构论文把它作为 inactive/antagonist-bound 状态与激动剂—Gs 复合物比较。也就是说,即使设计时移除了 SHU9119,受体口袋的几何仍由一个已知环肽配体和结晶构建体塑造。作者又从已知口袋残基中挑选 3 个 hotspot,引导候选进入这个位置。这个起点并不中性,只是它携带的先验没有写成一条配体序列。
有趣的是,这套设置同时找到了激动剂和拮抗剂。它提示口袋占据和较高 AF2 置信度并不能自动决定功能方向;激动或拮抗可能取决于更细的侧链排列、受体构象变化和信号耦联。对于 GPCR 设计,是否比找到一个 binder多了一层难度。
论文没有做的对照:分别使用 6W25、setmelanotide 结合的活性态 7AUE/7PIU、α-MSH 结合的 7F53,以及其他可用状态运行同一设计流程。然后比较四件事:生成序列的交集、进入正构口袋的姿态、激动剂/拮抗剂比例,以及相同实验预算下的命中率。只有这样的消融,才能判断中间态减少偏差是有效策略,还是一个事后合理化的解释。
为什么测 EC50,而不是先测 SPR 的 KD
对GPCR 激动剂来说,作者把 cAMP EC50 作为首要终点并不奇怪,与任务更匹配。亲和力还可以使用一些物理计算指标评估,而对于EC50这种功能评价,目前有没有合理的指标呢?此外作者的核心评估是iptm这种指标,其与EC50有何关系。
6.7 nM 主要是怎样得到的
初始计算 hit 是 340 nM,E5P 是 6.7 nM。这个跃迁是实验来成熟的工作。为何这里不使用AI呢,直接用序列设计模型做优化会更de novo,还是作者做了但是效果不好?
DMS 库包括所有 304 个单点替换,以及随机选择的二点和三点变体,共成功测试 835 条。HLE 扫描又测试 173条,组合库测试 181 条。三部分合计至少 1189 个成功进入功能实验的局部变体,比首轮成功合成的 363 条 de novo 线性和环肽还多。E5P 本身来自全单点扫描中最有效的一次替换。


图3|DMS、HLE 与组合库给出的局部效力分布。E5P 的发现建立在大规模单点扫描上;组合库还显示多个脯氨酸替换并不简单相加。来源:Møller等,Fig. 2。
这不是否定计算设计(虽然好奇作者为何不用计算做设计)。模型给出了一个可以继续优化的环肽 scaffold,而实验搜索把它推到纳摩尔水平。二者回答的问题不同:模型扩大起点空间,DMS 建立局部 SAR。对药物研发来说,能把两段流程接起来比坚持纯 AI更有用。
不过,论文中的随机森林和 SHAP 主要用于解释已经测过的数据。方法没有报告独立测试集、交叉验证误差,也没有证明模型比简单的位置均值、加性模型或经验挑选更能预测下一轮变体。组合库确实由前一轮结果指导,但最关键的 E5P 是穷举单点后直接观察到的。
所以,还是要明确写出6.7 nM的结果:340 nM 的新序列起点支持计算设计的前瞻贡献;51 倍效力提升主要支持系统实验成熟的贡献;随机森林是否节省了实验量,现有数据无法判断。
DMS 实验
这部分实验对实际项目很有参考价值。作者没有只围绕一个预测姿态做少数看起来合理的突变,而是测了大范围替换。对于模型尚不擅长的环肽构象和 GPCR 功能,这可以减少被单一结构假设带偏的风险。其次,结果显示明显的位点依赖。APWR四个位点很难改,第 5、6、7、11、13 位更容易调节效力。把脂肪酸连接到第 2—4 位通常伤害活性,第 5 和第15 位相对耐受。这些信息及其重要,都是来自湿实验。再次,两个看起来有利的脯氨酸替换放在一起并没有得到相加收益。环肽的主链约束高度耦合,单点效应不能简单外推到组合。多点突变空间的困难不只是组合数量,而是上位性会改变局部构象和作用机制。 这一点与酶和抗体工程中的组合突变问题相通。
数据上来看DMS、HLE 和组合库来自不同批次,作者用参考肽在 log potency 空间做加性校正。这样的处理适合早期排序,但没有传播参考肽测量误差,也没有把批次作为层级随机效应。粗肽只有 5 个浓度、单次测量,Hill 系数和上下限还受到约束;未纯化样品的有效浓度也会受纯度和副产物影响。作者后来用纯化肽、11 个浓度和两次独立实验复核关键分子,这一步很重要,但两次实验仍不足以细致描述不确定性。
如果要检验机器学习的增量,可以在每轮实验前冻结模型和选择规则,预留一批未见组合,并在相同数量的合成名额下比较随机森林、简单加性模型、专家选择和随机抽样。这样才能回答模型是否少测了肽,而不只是模型能否解释已经测到的 SAR。
E5P 的选择性
纯化后的 E5P 对 hMC4R 的 EC50 为 6.7 nM,但它不是 MC4R 专一激动剂:hMC1R 为 73 nM,hMC5R 为 29 nM,hMC3R 为 210 nM 且只有 38% efficacy。它在所测家族中对 hMC4R 最强,却仍保留明显的跨亚型药理(换个角度来说我们仍未知道作者在设计的时候从同家族中获取了多少先验),这说明摆脱 HFRW不自动带来选择性。正构口袋在 MCR 家族中高度保守,新的肽骨架仍可能使用共享的疏水和正电相互作用。脂化变体甚至出现 hMC1R 激动和 hMC2R/3R/5R 拮抗混合在一起的复杂谱。
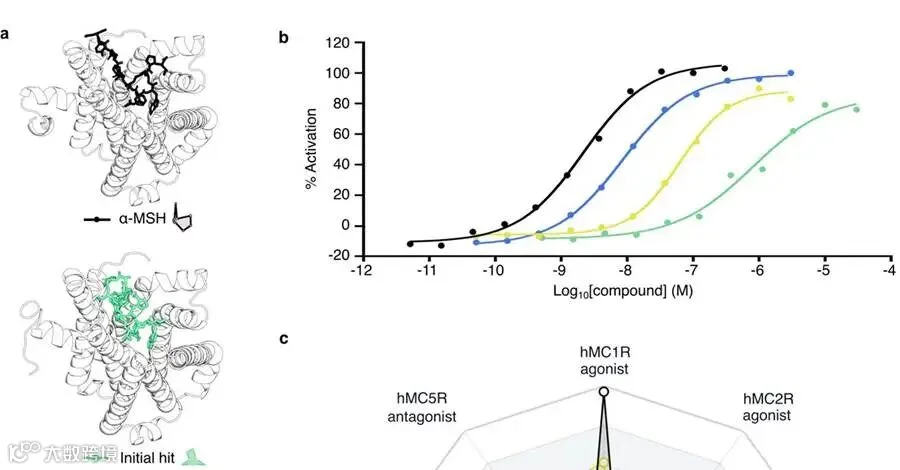

图4|纯化肽的 hMC4R 浓度—反应曲线与 MCR 家族药理。E5P 对hMC4R 最强,但并非单一亚型选择性激动剂。
从分子设计看,下一步不只是继续压低 hMC4R EC50,而是把 hMC1R、hMC3R 和 hMC5R 的活性作为负设计目标,同时比较不同信号通路。药效更强和药理更干净并不是同一个优化方向。
小鼠实验
聊一些小点:给药方式是脑室注射。它绕过了吸收、蛋白酶降解、血浆蛋白结合、组织分布和血脑屏障。论文前面做了 HLE 扫描,但进入动物的是未脂化 E5P,因此 HLE 研究尚未与体内路径接上。只有一个剂量和一个 vehicle 对照,没有 setmelanotide 或 α-MSH 阳性对照,也没有 MC4R 拮抗剂、Mc4r 缺失动物或受体占有实验。饮水量同步下降。活动不变可以排除明显镇静,却不能排除其他中枢反应、应激或不适。增加条件性味觉厌恶、恶心相关替代读数,以及正常进食而非只在禁食复食条件下测试,会让行为解释更清楚。
这篇论文带来的一些启发
功能终点应尽早进入设计流程。 对 GPCR 来说,结合只是第一层。激动、拮抗、部分激动和信号偏向可能来自很接近的口袋占据方式。本文首轮直接测 cAMP,因此发现了线性肽和环肽不同的功能倾向,也避免把高置信 binder 统一当成激动剂。
从头设计需要说明是哪一种新。 新序列、新骨架、新药效团、新结合姿态和新靶点能力不是同一个结论。本文对新序列起点的支持较强,对替代 motif 有功能数据,对新结合姿态和跨受体通用性仍缺少实验。
实验成熟。 一个 340 nM 的起点能够承受大量替换、环化依赖明确,并能通过单点突变提高到 6.7 nM,本身说明 scaffold 有可优化性。药物研发关心的是能否持续改进。所以后续成功不能被生成模型窃取。 当1189 个局部变体承担了效力、脂化位点和上位性探索时,文章应同时承认实验 SAR 的主导作用。模型给起点,实验给局部地图,二者结合才构成这篇工作的主体。
受体状态选择应从经验变成可检验变量。 6W25 的选择可能很聪明,也可能只是恰好可用。把不同状态作为并行输入,比在成功后解释某个状态为何合适更能形成可迁移的方法。
结语
这篇预印本作者确实找到了一条不同于已知天然肽序列的环肽起点,做了规模不小的局部实验搜索,并把一个纳摩尔级激动剂带进了小鼠急性行为实验。
它目前能支持的范围也很清楚:新的序列 scaffold、可测的 hMC4R cAMP 激动、DMS 驱动的 51 倍效力提升,以及脑室给药后的短时摄食下降。
还没有解决的问题包括:AF2 排名相对于简单方法的增量、APWR 是否对应新的实验结合模式、不同受体构象输入是否改变成功率、E5P 的体内效应是否由 MC4R 单独介导,以及系统给药后能否获得合适暴露。
整体来说还是一篇计算方法找到一个陌生起点,药物化实验把它变成更强的分子,而论文留下了足够多的对照问题,提醒我们下一次怎样把计算贡献、药理机制和开发路径分得更清楚。(最后提一嘴,可以算一下这个作者多肽合成的成本,是否适合你的公司或者课题组。)
参考文献
1.Møller V, Johansen JM, Mikkelsen RB, et al. De novo designed cyclic MC4R peptide agonist reduces food intake in mice. bioRxiv, 2026, version 2. DOI: https://doi.org/10.64898/2026.05.19.721857
2.Yu J, Gimenez LE, Hernandez CC, et al. Determination of the melanocortin-4 receptor structure identifies Ca2+ as a cofactor for ligand binding. Science, 2020, 368:428-433. DOI: https://doi.org/10.1126/science.aaz8995
3.Israeli H, Degtjarik O, Fierro F, et al. Structure reveals the activation mechanism of the MC4 receptor to initiate satiation signaling. Science, 2021, 372:808-814. DOI: https://doi.org/10.1126/science.abf7958
4.Heyder NA, Kleinau G, Speck D, et al. Structures of active melanocortin-4 receptor-Gs-protein complexes with NDP-α-MSH and setmelanotide. Cell Research, 2021, 31:1176-1189. DOI: https://doi.org/10.1038/s41422-021-00569-8
5.Zhang H, Chen LN, Yang D, et al. Structural insights into ligand recognition and activation of the melanocortin-4 receptor. Cell Research, 2021, 31:1163-1175. DOI: https://doi.org/10.1038/s41422-021-00552-3
6.U.S. Food and Drug Administration. IMCIVREE (setmelanotide) Prescribing Information. 2026. https://www.accessdata.fda.gov/drugsatfda_docs/label/2026/213793s009lbl.pdf
7.Frank C, Khoshouei A, Fuß L, et al. Scalable protein design using optimization in a relaxed sequence space. Science, 2024, 386:439-445. DOI: https://doi.org/10.1126/science.adq1741
8.Martin C, Gimenez LE, Williams SY, et al. Structure-Based Design of Melanocortin 4 Receptor Ligands Based on the SHU-9119-hMC4R Cocrystal Structure. Journal of Medicinal Chemistry, 2021, 64:357-369. DOI: https://doi.org/10.1021/acs.jmedchem.0c01620
9.Yan LZ, Hsiung HM, Heiman ML, et al. Structure-activity relationships of beta-MSH derived melanocortin-4 receptor peptide agonists. Current Topics in Medicinal Chemistry, 2007, 7:1052-1067. DOI: https://doi.org/10.2174/156802607780906591
10.Muratspahić E, Aslanoglou D, White AM, et al. Development of Melanocortin 4 Receptor Agonists by Exploiting Animal-Derived Macrocyclic, Disulfide-Rich Peptide Scaffolds. ACS Pharmacology & Translational Science, 2023, 6:1373-1381. DOI: https://doi.org/10.1021/acsptsci.3c00090