



栉孔扇贝,大规模死亡,原因,分析

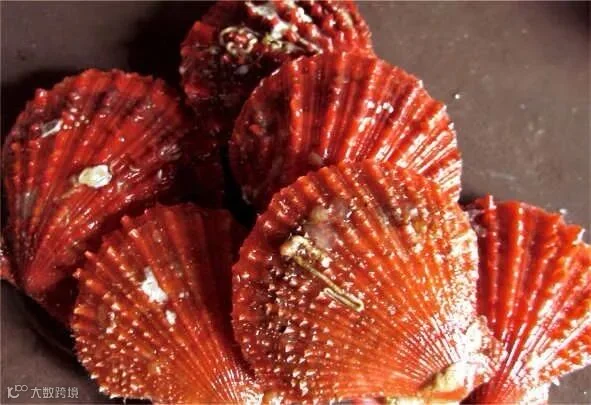
1998年7月下旬以来,我国北方沿海栉孔扇贝相继发生大规模死亡,这是继1997年以来的第二次栉孔扇贝发生大规模死亡。与上一年相比,1998年的栉孔扇贝发病迅速,死亡率高。一般认为,1997年栉孔扇贝大规模死亡的直接原因是由于厄尔尼诺现象导致的长期水温过高,体弱的扇贝难以耐受而死;而1998年的水温明显低于1997年,约2℃左右,但1998年栉孔扇贝仍然大规模死亡,其中原由令人费解。本文是在对山东等地栉孔扇贝大规模死亡调查的基础上,谈一谈个人的观点。
1 基本情况
调查中发现,栉孔扇贝死亡的主要特征包括大规模死亡发生在夏季高温期,各海区水温均在24℃以上;近岸养殖的栉孔扇贝死亡率明显高于远岸;放养密度高的海区栉孔扇贝的死亡率明显较高,而放养密度合理的海区即使死亡,死亡率也较低;同一批养殖在同海区的栉孔扇贝,规格大的死亡率比规格小的死亡率高;人工育苗养成的栉孔扇贝死亡率比自然采苗的死亡率低。养殖海区栉孔扇贝大规模死亡显示出的规律性,同样也为我们思考和揭示其死亡机制提供很多启示。为了更好地理解栉孔扇贝大规模死亡的原因,有必要对山东沿岸栉孔扇贝养殖业的发展作一回顾。
2 山东沿岸扇贝养殖业发展中各阶段的特点

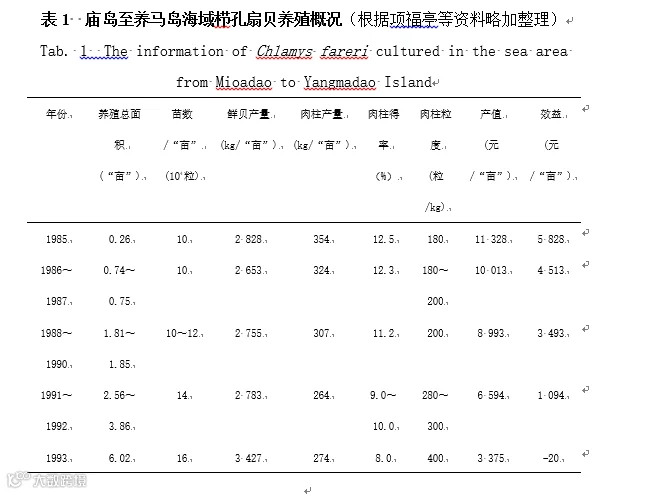
从扇贝养殖业的综合效益来看,栉孔扇贝养殖业的发展过程大致可分为3个时期(以烟台市庙岛以东海域为例表1):其一是1990年以前的正常发展期,此间放养密度一般为100 000粒/“亩”,平均“亩”产肉柱在300kg以上,肉柱得率在11%以上,肉柱粒度不超过200粒/kg,该时期养殖面积不超过20 000“亩”。其二为1991~1994年的质量下降期,该期养殖密度提高到140 000~160 000粒/“亩”,肉柱得率降至8%~10%,肉柱粒度为200~400粒/kg,养殖面积扩大到约70 000“亩”。其三为1995年以后的大规模死亡期,该时期养殖密度进一步提高,有些养殖海区不得不采取选择较大的个体收获,从而延长了养成期。此后全省养殖面积变化不大,但不少养殖海区栉孔扇贝养殖密度增加到240 00~500 000粒/“亩”以上,结果从1995年开始大规模死亡屡有出现,并显上升势头,栉孔扇贝养殖业严重滑坡。
应当指出,长期高密度养殖加剧了养殖海区的老化或恶化,是近年来栉孔扇贝连年大规模死亡的根本原因,而夏季高温、栉孔扇贝种质的衰退、抗逆能力的下降及病原生物在一定条件下的滋生与栉孔扇贝死亡也有一定关系。


3 栉孔扇贝大规模死亡原因
3.1 浅海养殖海区生态环境的恶化或老化
浅海养殖海区环境恶化或老化的原因是养殖海区的自身污染和陆源污染,这是栉孔扇贝大规模死亡的根本原因。渤海每年接纳的污水高达2.8×10⁹t,各类污染物7.0×10⁵t。筏式养殖海区自身污染也很严重,并易被忽视。由于滤食性贝类快速的滤食作用、较低的同化率及大量粪便和假粪的形成,在养殖海区滤食性贝类产生的生物性沉积量十分惊人,日本广岛湾每台筏架(165 m 2)长牡蛎每年排粪19.3 t;在我国,每“亩”栉孔扇贝(按100 000粒计)平均每年可排出9 t多的粪便和假粪(湿重)。事实上,目前山东沿岸某些海区的栉孔扇贝养殖密度超过上述密度的3~4倍,附着生物的粪便尚未计入。自身污染严重的程度可想而知,局部养殖海区在高温季节赤潮时有发生。同时,由于不少筏式养殖海区波浪作用和流速都受到筏架的影响,水流对筏式养殖区生物性沉积的悬浮、移动等作用的实际意义不大。养殖历史较久、养殖密度较大的海区,如青岛的胶州湾、烟台的四十里湾等,栉孔扇贝死亡期出现得更早,死亡率更高。
3.2 栉孔扇贝种质衰退,抗逆能力下降
90年代初,我国海湾扇贝养殖业因种质问题而滑坡,又因引种复壮解决种质问题而振兴的教训与经验是深刻的。栉孔扇贝种质衰退,抗逆能力下降等问题也应引起有关部门的高度重视。1973年我国首次在大连培育出第一批栉孔扇贝苗,此后在烟台、青岛等地都先后培育成功,人工培育的苗种遂成为养殖用苗的主要来源。随着养殖群体的逐渐增大,养殖海区的“自然苗”逐渐增多,80年代末开始人工采集“自然苗”,90年代以后,养殖单位主要采用“自然苗”进行养殖生产。应当指出,这些“自然苗”也是十多年人工育苗养成群体的后代。据调查,整个山东沿岸养殖的栉孔扇贝苗种,大多是采自烟台市沿岸养殖区。单一的苗种来源随着养殖代数的增加,频繁的近交势必导致整个物种的遗传衰退。应当指出,天然采苗场附近海区中,养殖群体被人为地筛选为大、中、小3种规格。规格较大的一类苗养成的扇贝在冬末收获,二类苗(中等规格)养成的扇贝在春节后收获,只有规格最小、体质最差的三类苗才有机会留在春末夏初做亲贝繁殖后代。以此恶性循环,一代不如一代。尽管目前认为栉孔扇贝种质退化缺乏遗传学证据,但栉孔扇贝抗逆能力的减弱及规格的小型化等是有目共睹的。
3.3 过度密集养殖、饵料不足的影响
70年代日本虾夷扇贝养殖业已发展到相当大的规模,由于养殖密度过大,破坏了生态平衡,先后发生养殖群体的大批死亡。日本底播养殖虾夷扇贝达到商品规格需2.5~3a,当虾夷扇贝密度超过5~6个/m2时,生长率就会下降。在自然条件下,当虾夷扇贝生物现存量达到1.0 kg/m2以上时,生长率同样受到密度制约。值得注意的是产量较高的扇贝捕捞场中,平均密度很少超过10个/m2。我国栉孔扇贝大规模死亡与日本虾夷扇贝的死亡具有一定的相类似。本次调查中发现,不少养殖海区的栉孔扇贝放养密度令人瞠目。一层笼放养量一般为120粒,甚至达到190粒以上。如此高的笼养密度,势必导致部分扇贝摄食不足,或者根本无食可取,体质的下降实属难免。一旦环境不适,患病和死亡的可能性较大;而部分扇贝的死亡又可能诱发大批扇贝的死亡。从整个养殖海区来看,不少海区平均每平方米海面养殖扇贝曾高达约70粒(经近年调整后尚达约35粒),此养殖密度已远远超过海区的负荷能力,不利于扇贝的生长和生存。当前我国正处于连片利用数十万亩海域发展海水养殖的时代,对养殖密度的宏观调控应引起足够的重视。
3.4 夏季高温的影响
近几年栉孔扇贝的大规模死亡主要出现于8月前后的高温期,高温的影响显而易见。目前,不少养殖海区中栉孔扇贝在水温超过23℃以上时,分泌足丝较少,难以附牢。已附着者足丝易从基部脱落,特别笼内密度较高时。周年监测的结果表明,栉孔扇贝在水温23℃以上的海区中,软体部生长缓慢,甚至完全停止。生理生态学研究也证实,当水温超过23℃时。栉孔扇贝耗氧率逐渐下降,而排泄率仍逐渐增加,表现为大量消耗体内的蛋白质。由此可见,23℃以上水温将对目前栉孔扇贝养殖群体的代谢和生长产生一定的影响,其结果导致了栉孔扇贝抗逆能力的减弱。
3.5 病害
贝类的病原生物主要有:寄生原虫、细菌、类立克次氏体、类衣原体、类支原体、病毒等几大类。单孢子虫属的寄生原虫种类很多,其中多核球虫(Haplosporidium nelsoni)在1957~1959年间曾流行于美国新泽西洲Delaware海湾,使养殖的美洲牡蛎死亡率达50%~95%;BO (Bonamia ostreae)单孢子原虫是引起贝类。Bonamia病的病原体。1979年首次在法国发现,迅速漫延到英国、西班牙、荷兰、爱尔兰、美国和新西兰等国,给贝类的养殖造成重大损失;还有一种与Bonamia病交替暴发的马太尔单孢子虫(Maarteilia refringens)病,70年代曾引起西班牙扁牡蛎的大面积死亡。现已在贝类体内发现柏琴类原虫4个种:Parkensus marinus,P. karlssoni,P. olsem和P. atlanticus均可致病,宿主包括牡蛎、扇贝、蛤类和鲍鱼,主要分布在加拿大、美国及欧洲各国沿海水域。柏琴虫常与弧菌交叉感染,引起贝类大规模死亡。弧菌不仅本身可作为原发性病原,引起鱼、虾、贝病害,也是其他重要病原生物(如病毒,原虫等)的继发感染者。病原弧菌能够产生毒素,该毒素含有蛋白酶和溶血素,引起贝类病变而死亡。70年代末以来,在蛤类、牡蛎、扇贝和贻贝体内已陆续发现类立克次氏体,该类病原体能够对宿主组织造成损害,特别是在高密度养殖或自然应激条件下及高度感染时,常引起贝类大批死亡,如近年来由于感染类立克次体而导致近江牡蛎的大批死亡。1993年Comps等报道了3种牡蛎体内病毒。近年来,特别是随着对虾病毒病害研究的日益深入,贝类病毒病害的研究也日趋活跃。
初步监测结果表明,在栉孔扇贝体表或体内也存在着各种病原体,包括弧菌、柏琴虫和病毒等。前言述及,23℃以上的水温对栉孔扇贝不利,而对养殖环境中的病原体极为有利,高温加速养殖生态系统中有机物的分解,大风搅起沉积在海底的有机物质等,更加速各种病原体的繁殖;营养盐的大量释放也可能导致部分养殖海区赤潮时有发生。这些不利因素都可能导致栉孔扇贝的大规模死亡。
3.6 违反养殖操作规程
当前沿海劳动力不足,在海水养殖业的管理和操作过程中,有些单位养殖管理过于简单化,也有的单纯追求高产,甚至忽视或忘掉过去已创建的技术要点。同时,内地民工缺乏技术培训,操作不规范也是引起栉孔扇贝死亡的原因之一。

转自:沙噀 微信公众号

联络方式

长按识别二维码,获取博览会最新动态