


转录组发现候选通路后,怎样决定验证哪一条?
01转录组结果出来了,你却不知道下一步该做什么
一份转录组分析报告送到了你手里。

第一张是火山图。横轴记录基因表达变化的倍数,纵轴对应统计显著性。图中央聚集着大量变化较小的基因,左右两侧散落着表达上调或下调的基因。
第二张是热图。对照组和处理组的样本各自聚在一起,一部分基因在处理组变红,另一部分则变蓝。
再往下,是通路富集分析。
炎症相关通路出现了,细胞周期相关通路出现了,代谢调控和细胞死亡相关通路也出现在结果中。有的通路包含几十个差异表达基因,有的只有几个。每条通路后面还跟着富集分数和显著性数值。
你现在需要做一个决定:
下一轮实验究竟围绕哪条通路展开?
选择 PPAR,可能要检测受体活性、下游靶基因,再设计受体抑制与救援实验。
选择 NF-κB,实验可能转向 p65 核转位、蛋白磷酸化和炎症转录活性。
选择 p53,又会进入细胞应激、细胞周期以及线粒体功能调节等问题。
每条通路都能讲出一套生物学解释。但你手中的样本、实验经费和时间却有限。
富集不等于因果
更麻烦的是,通路富集结果本身无法告诉你,哪一条通路直接介导了治疗效果。
某条通路显著富集,可能意味着其中多个基因发生了表达变化。至于这些变化是否推动了疾病改善,需要实验来回答。
转录组技术发展到今天,你已经能够一次获得数万个基因的表达信息。但从几万条表达记录中选出一个值得验证的机制,需要逐步判断。
这一问题的形成,与转录组技术的发展有关。
02从一次检测几个基因,到同时观察整个转录组
1早期机制研究:研究者先选基因,再做实验
假设研究者发现,一种药物能够降低巨噬细胞释放的炎症因子。
接下来,他可能先查阅文献,寻找已经报道的炎症信号通路。
NF-κB 与炎症因子表达有关,于是研究者购买相应抗体,检测 p65 的蛋白表达或磷酸化水平。
如果结果发生变化,他再检测 IκBα、相关激酶及下游炎症因子。
实验就这样沿着一条已知通路向前走。
这种研究方式能够集中资源,逐个验证明确的生物学假说。它也受到研究者已有知识的影响。
当实验人员把注意力放在 NF-κB 上时,其他可能参与药物反应的代谢通路、细胞周期通路或细胞器质量控制过程,就可能暂时离开研究视野。
研究者希望有一种方法,能够在实验开始时同时查看更多基因。
基因表达芯片逐渐提供了这样的能力。
21995年,基因芯片把大量表达测量放到同一块玻璃上
1995年,Schena 等人在《Science》发表了使用互补 DNA 微阵列监测基因表达的研究。
研究人员把不同 DNA 片段固定在玻璃表面,再让带有荧光标记的核酸样品与它们杂交。
不同位置出现的荧光信号,可以反映相应基因的表达情况。
原本需要分别检测的基因,开始能够在一次实验中并行比较。
随后,微阵列的探针密度不断提高。研究者能够同时观察成百上千个基因,并把处理组与对照组之间的表达差异绘制出来。
但实验结束后,研究者很快遇到了另一个问题。
一张芯片可能显示数百个基因发生变化。这些基因的名称排成很长的表格,单独查看每个基因,很难直接理解细胞整体发生了什么。
于是,研究者开始把基因按照生物学功能分组。
参与免疫反应的基因放到一起,参与能量代谢的基因放到一起,参与细胞周期调节的基因也放到一起。
单个基因的表达变化,逐渐被组织成具有生物学联系的基因集合。
3GO 和 KEGG 让差异基因有了可以检索的生物学背景
研究者拿到一组差异表达基因后,可以将它们与已有数据库中的注释进行比较。
GO 将基因相关信息组织为生物过程、分子功能和细胞组分等类别。
例如,一组差异基因可能集中出现在细胞分裂、线粒体组织或炎症反应等生物过程的注释中。
KEGG 则提供代谢、信号转导和其他生物学过程的通路信息。
如果差异基因中有较多成员属于某条通路,研究者就可以进一步判断这种集中出现的程度是否超出了随机预期。
富集分析由此成为连接基因表达数据与生物学假说的一种常用方法。
但富集分析也带来一个限制。
假设某条通路包含 100 个基因,其中只有 8 个通过差异表达筛选阈值。由于阈值的存在,另外一些变化幅度较小、但方向一致的基因可能被排除在分析之外。
研究者因此开始考虑另一种分析方式:保留所有基因的排序信息,检查某个基因集合是否整体向排序的一端聚集。
42005年,GSEA 开始从整张表达排序表中寻找通路变化
2005年,Subramanian 等人在《PNAS》发表了基因集富集分析方法,即 GSEA。
这种方法可以将全部检测基因按照某个统计指标排序,再检查预先定义的基因集合是否集中出现在排序靠前或靠后的位置。
假设一条通路包含 30 个基因。
其中只有少数基因通过传统差异表达阈值,但大部分成员都朝相同方向发生了较小的变化。
在某些情况下,这样的变化模式仍可能被 GSEA 识别出来。
分析结果通常包括富集分数、标准化富集分数、显著性指标以及对富集信号贡献较大的核心基因。
研究者能够据此发现更多候选生物学过程。
但一条通路进入显著富集结果,只能表示表达数据与该基因集合之间出现了统计关联。
基因集合中可能包含通路激活因子、抑制因子和反馈调节因子。它们即使整体向表达排序的一端聚集,也不能证明通路的最终功能状态。
此外,基因表达属于转录层面的测量。许多信号通路的活动还受蛋白磷酸化、蛋白定位、配体结合和蛋白复合物形成等过程控制。
因此,GSEA 可以帮助研究者决定下一步看哪里。
具体通路是否介导治疗效果,还是要回到细胞里继续观察。
5RNA测序让候选通路越来越多
2008年前后,RNA测序逐渐成为研究基因表达的重要技术。
研究人员提取 RNA,构建测序文库,再根据测序数据估计不同转录本的丰度。
与依赖预先设计探针的芯片相比,RNA测序能够以不同方式分析基因表达,并支持转录本层面的研究。
随着测序成本下降,差异表达分析、GO、KEGG 和 GSEA 逐渐成为许多生命科学论文中的常见组合。研究者现在经常能在一篇文章中看到火山图、热图、富集气泡图和多条 GSEA 曲线。
数据量增加以后,机制研究出现了一个新的选择困难。
研究者需要从这些结果中确定一条可以被实验检验的因果路径。
下面这篇《Advanced Science》论文,正好提供了一个具体案例。
03回到论文:差异基因出现后,作者看到了什么?
2026年,Luo 等人在《Advanced Science》报道了一种用于细菌性肺炎治疗的纳米酶 BN@NF。
材料由硼纳米片和钕掺杂磷化铁构成。经过超声与交变磁场刺激后,材料能够增强活性氧相关反应,提高对耐药细菌的杀伤效果。
论文前半部分先验证材料的抗菌性能。Figure 4 中,研究者通过菌落计数、细菌形态观察、核酸与蛋白泄漏检测以及生物膜实验,观察到了处理后细菌存活与结构发生的变化。
随后,研究人员建立小鼠细菌性肺炎模型。Figure 6 显示,BN@NF 与双刺激联合处理后,肺组织中的细菌负荷显著下降,肺组织病理损伤也得到改善。
但肺炎治疗还涉及炎症反应。
细菌感染时,大量免疫细胞聚集到肺组织。炎症因子升高,肺泡结构受到损伤。即使细菌负荷下降,研究者仍然需要了解治疗过程中肺组织的免疫状态怎样改变。
因此,作者继续分析巨噬细胞表型、炎症因子以及肺组织内的信号变化。
在 Figure 5 中,作者已经观察到一些与抗炎作用有关的现象。
BN@NF 处理后,RAW264.7 巨噬细胞的 CD86 阳性比例降低,CD206 阳性比例增加。细胞培养上清中的 IL-1β 下降,IL-10 上升。
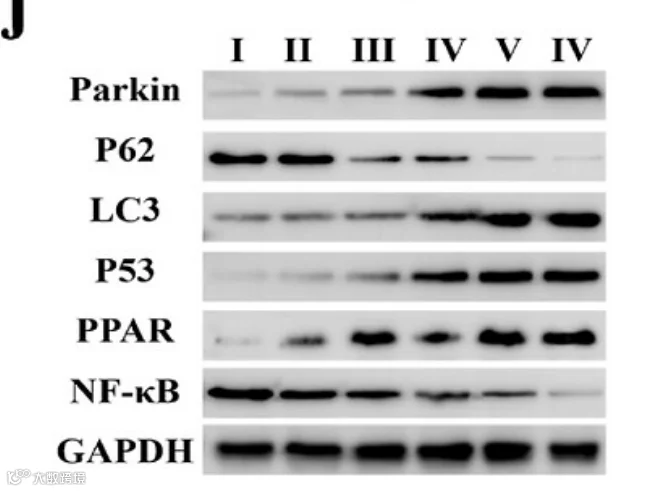
Western blot 结果显示,PPAR 蛋白水平上升,NF-κB 总蛋白水平下降,同时伴随 Parkin、LC3 和 p62 等自噬相关蛋白变化。
这些细胞实验提供了候选机制线索。
但细胞实验测量的是研究者预先选定的分子。
在完整肺组织中,除了巨噬细胞,还有中性粒细胞、肺泡上皮细胞、血管内皮细胞及其他细胞群体。
治疗后,这些细胞可能分别改变自己的基因表达,也可能出现数量变化。
作者因此使用肺组织转录组,观察治疗后更广泛的表达变化。
1Figure 7d:火山图上出现了1,092个差异表达基因
作者取感染对照组和 BN@NF+AMF+US 治疗组的小鼠肺组织,提取 RNA 并开展转录组分析。
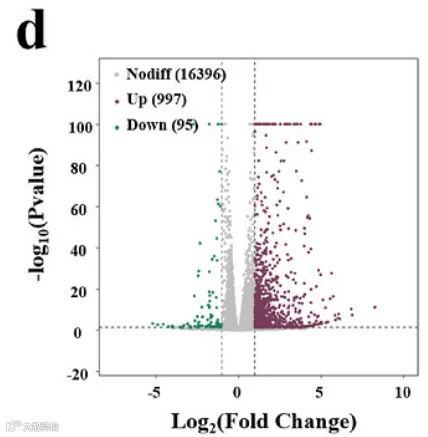
差异表达分析识别出 1,092 个基因。
其中,997 个在治疗组上调,95 个下调,另有 16,396 个基因未达到差异表达判定标准。
上调基因数量远多于下调基因,但仅凭这个数量比例,无法判断治疗整体激活了哪一种细胞功能。
这些上调基因可能来自组织修复相关过程,也可能与细胞周期变化或肺组织细胞组成改变有关。
要回答它们集中在哪些功能中,研究者继续查看富集结果。
2Figure 7e:热图将两组样本分开
作者把差异表达基因放进热图中。
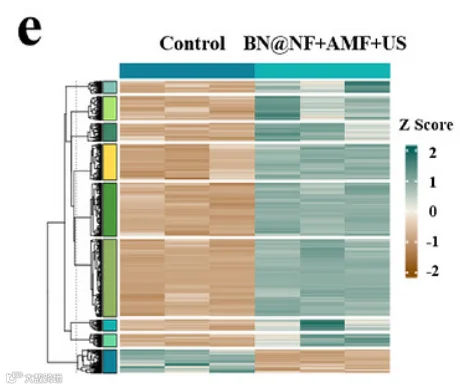
不同基因按照表达模式排列,不同样本则显示各自的表达水平。
治疗组和感染对照组在热图中形成较清晰的分组。这种分离说明,两组肺组织在这些基因的表达模式上存在差异。
不过,热图的分组效果也受到所选基因的影响。
如果先利用相同样本筛选差异表达基因,再用这些基因绘制热图,两组能够分开是一种可以预期的结果。
因此,研究者还需要回到差异分析本身,检查样本重复、表达变化幅度、多重检验校正以及数据质量。
论文正文在这一部分报告了差异表达结果,但没有提供足够详细的分析阈值与全部基因层面信息。
接下来的富集分析,能够进一步显示这些变化主要落在哪些功能类别中。
3Figure 7f:GO结果先指向了细胞周期和细胞器相关过程
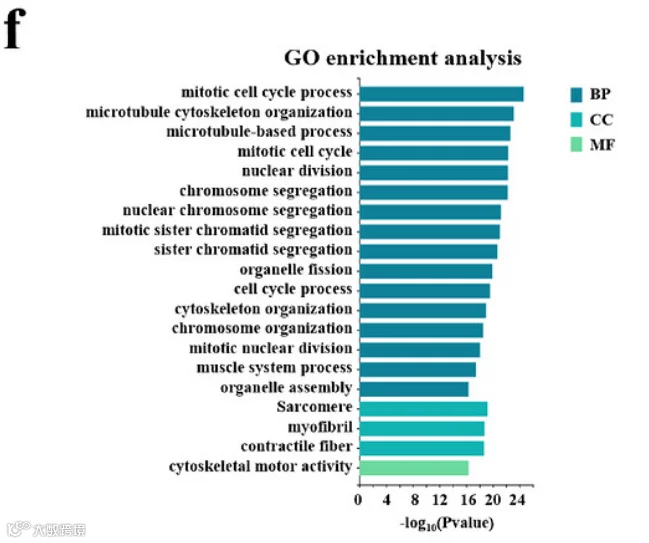
GO 分析显示,差异基因集中涉及有丝分裂细胞周期、细胞器分裂、细胞器组装、微管相关过程和染色体分离等。
这些类别与治疗后肺组织可能发生的细胞增殖及结构变化有关,但它们还没有直接回答作者提出的抗炎机制问题。
例如,细胞周期相关基因增加,可能来自组织修复阶段的细胞增殖,也可能反映某些细胞群体比例增加。
只观察整块肺组织的表达数据,暂时无法确定是哪类细胞贡献了这些变化。
如果研究者想沿着细胞周期继续研究,就需要确定细胞来源,并观察相关细胞的实际增殖状态。
作者继续查看 KEGG 分析结果。
4Figure 7g:多条候选通路同时出现
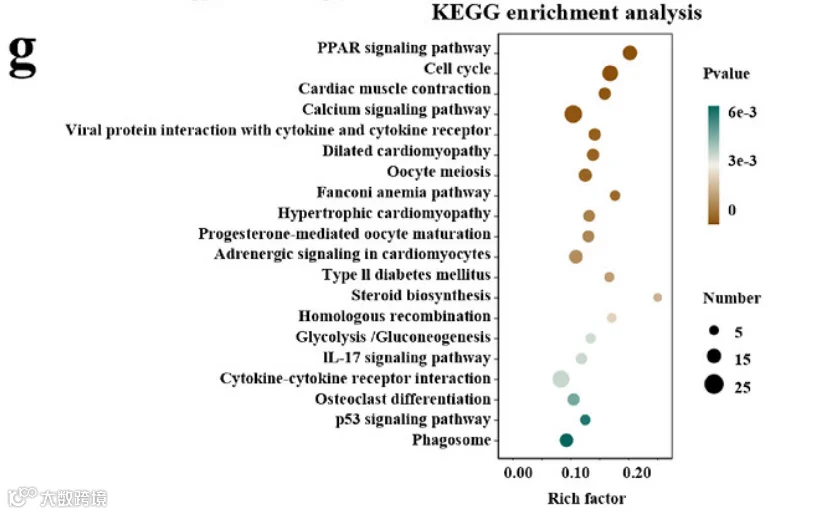
KEGG 富集结果涉及 PPAR 信号、细胞周期、细胞因子与受体相互作用、IL-17 信号、p53 信号以及吞噬体功能等。
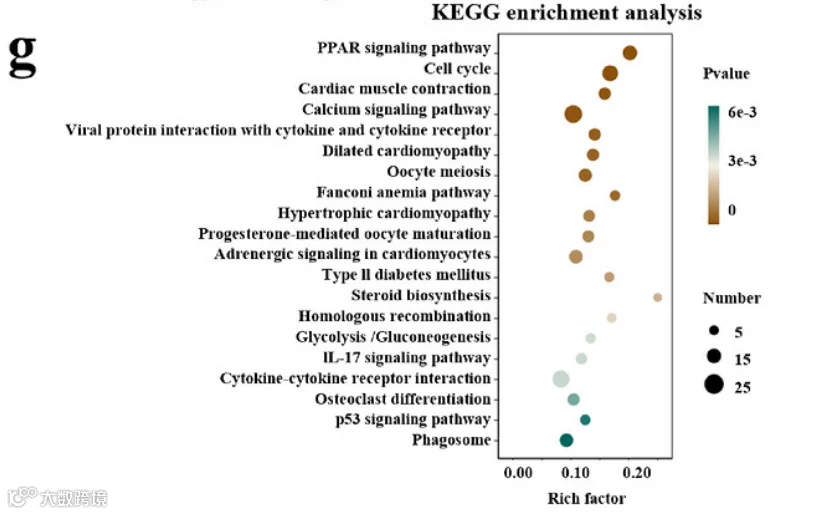
这些通路各自对应不同的生物学过程。
细胞周期与细胞增殖有关,
IL-17 与炎症相关细胞间信号有关,
PPAR 参与代谢与免疫调节,
p53 涉及细胞应激、细胞周期及其他细胞功能,
吞噬体相关通路则与细胞摄取及处理外来物质等过程有关。
面对这些结果,研究者需要继续检查每条通路的富集强度和具体基因。
作者于是开展了 GSEA 分析。
04四条候选通路摆在面前,哪一条更值得验证?
Figure 7h–k 报告了四条通路的 GSEA 结果。
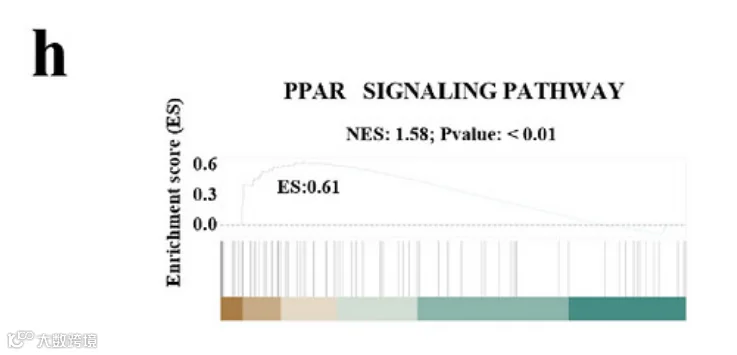
PPAR NES 1.58 p < 0.01 |
IL-17 NES 1.36 p < 0.05 |
p53 NES 1.09 论文报告 p < 0.5 |
NF-κB NES 0.71 p > 0.5 |
四条通路都有正向富集分数,但统计证据的强弱并不相同。
1PPAR:组学结果与已有蛋白证据能够接上
PPAR 通路的标准化富集分数达到 1.58,报告的显著性水平也较高。
作者此前还在 Figure 5 中观察到 PPAR 蛋白水平上升。
这样一来,两个层面的结果开始接近。
在肺组织转录组中,PPAR 相关基因集合出现富集。
在巨噬细胞实验中,PPAR 相关蛋白发生变化。
同时,处理组还出现了炎症因子和巨噬细胞表型的改变。
这几个结果支持研究者把 PPAR 放入候选机制的前列。
但它们仍然测量了不同层面的对象。
肺组织 GSEA 反映的是一组基因的表达排序。
Western blot 反映的是样品中的蛋白丰度。
巨噬细胞表型实验则观察 CD86、CD206 等指标。
PPAR 蛋白增加以后,受体是否已经进入活跃状态?哪些靶基因受到调控?这种调控是否引起炎症因子变化?这些问题还需要继续检测。
还有一个具体细节需要处理。
PPAR 是一个核受体家族,包含 PPARα、PPARβ/δ 和 PPARγ 等成员。
论文方法部分列出了 PPARγ 抗体,而结果描述在部分位置使用了较宽泛的 PPAR 名称。
因此,设计后续实验时,应先核对原始 Western blot 条带、抗体信息以及转录组中的具体成员,明确作者检测的是哪一种亚型。
在此基础上,才能把下一轮机制验证准确地落到 PPARγ 或其他具体成员上。
2IL-17:转录组正向富集,炎症因子水平却下降
IL-17 通路的标准化富集分数为 1.36,报告的 p 值小于 0.05。

然而,在 Figure 7b 中,研究者测量到的 IL-17 蛋白浓度下降了。
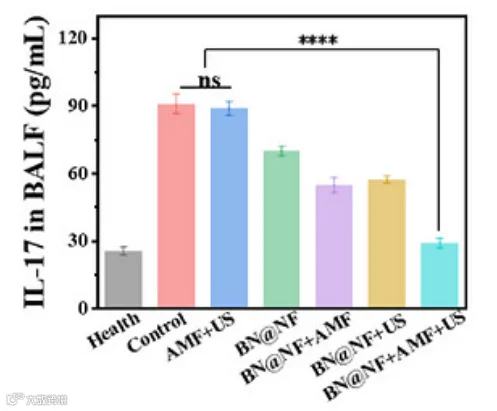
感染对照组的支气管肺泡灌洗液中,IL-17 约为 90 pg/mL。
BN@NF 双刺激治疗后,这一数值降至约 30 pg/mL。
同一项研究中,IL-17 相关基因集合呈正向富集,IL-17 蛋白浓度却下降。
如果直接把正向富集理解为 IL-17 炎症信号增强,就会遇到解释冲突。
这时候应该回到 GSEA 的核心基因。
IL-17 信号通路中包含参与信号传递、反馈调节和下游反应的不同成员。一部分基因表达上升,可以推动整个基因集合在排序中的位置发生变化,却未必意味着 IL-17 配体水平上升。
此外,GSEA 分析使用的是肺组织 RNA,ELISA 检测的是灌洗液中的蛋白。
两个检测来自不同的分子层面和样品环境。
如果研究者打算把 IL-17 作为主要机制,就需要查看核心富集基因的具体方向、细胞来源和通路功能,并进一步检测相关蛋白及信号活性。
仅依据目前的结果,IL-17 更适合作为需要解释的炎症相关候选通路。
3p53:已有细胞蛋白变化,组织层面的富集证据较弱
Figure 5 中,作者观察到 p53 蛋白表达呈上升趋势。
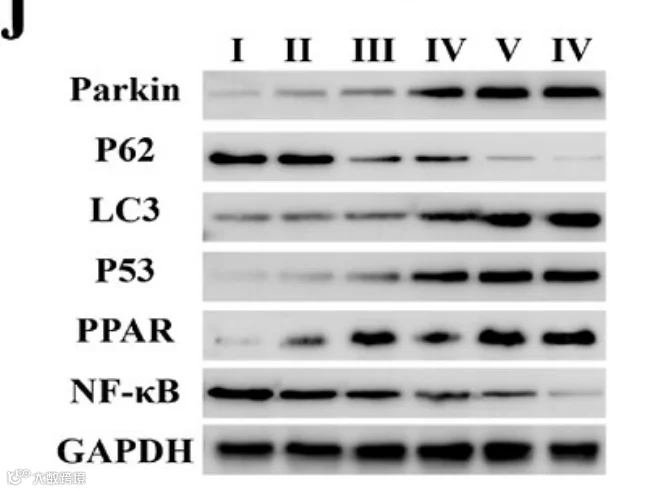
p53 与细胞应激反应密切相关,也可能参与调节线粒体功能和细胞命运。
如果只看这一项蛋白结果,研究者可以提出 p53 参与治疗反应的假说。
但到了 Figure 7 的 GSEA,p53 通路的标准化富集分数只有 1.09,论文报告的 p 值阈值为小于 0.5。
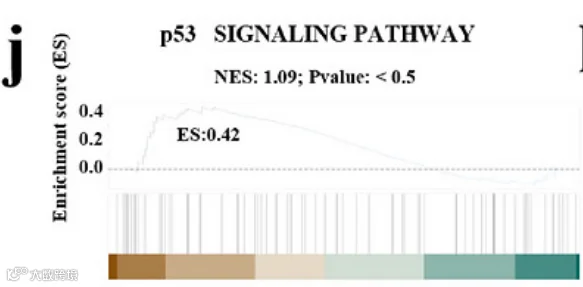
这个阈值不足以支持常规意义上的统计显著性判断。
因此,转录组结果尚未为 p53 通路提供强有力的独立支持。
如果继续研究 p53,就需要先确定它与炎症或线粒体变化之间的具体关系。
例如,p53 蛋白上升之后,相关转录活性是否改变?下游靶基因是否出现一致响应?抑制 p53 是否会改变材料处理后的细胞表型?
这些实验将决定 p53 是否值得继续作为主线。
4NF-κB:蛋白信号下降,但整个基因集没有显著富集
Figure 5 中,作者报告 NF-κB 总蛋白表达下降。
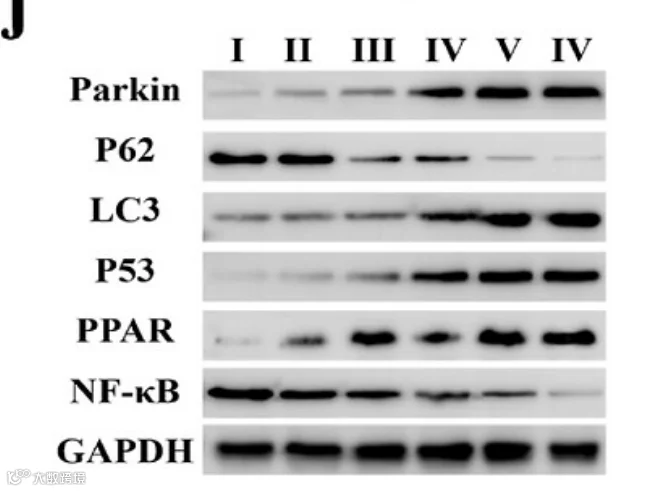
Figure 7c 的肺组织免疫组织化学结果也显示,治疗后 NF-κB 染色信号减弱。
但 Figure 7k 的 GSEA 结果显示,NF-κB 通路的标准化富集分数为 0.71,p 值大于 0.5。
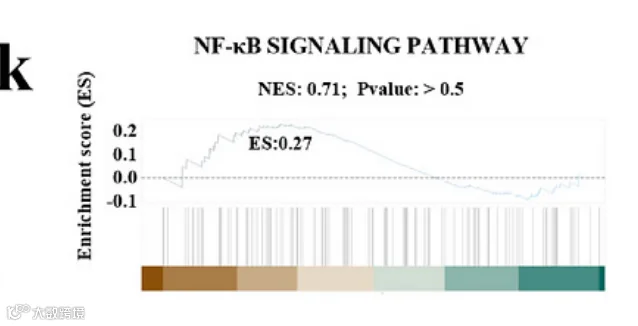
这一结果没有提供显著的整体基因集富集证据。
两种观察可以同时成立。
NF-κB 通路的活动受到蛋白磷酸化、抑制蛋白状态和核转位等调节。
即使相关转录因子的活性下降,也未必伴随整个通路基因集合在 RNA 表达排序中显著富集。
因此,后续验证应关注 NF-κB 活性本身。例如,可以检测 p65 的磷酸化状态、核内定位或转录活性,再与下游炎症因子表达联系起来。
目前的蛋白与组织染色结果支持 NF-κB 相关变化,但无法确定 PPAR 是否位于它的上游。
研究者需要通过干预实验验证两者之间的关系。
05为什么可以优先选择 PPAR?
现在把四条候选通路放在一起。
PPAR 获得了相对较强的 GSEA 富集支持,同时在细胞蛋白检测中出现了相应变化。
IL-17 获得了一定的基因集富集支持,但通路富集方向与测得的 IL-17 蛋白浓度变化需要进一步解释。
p53 在细胞蛋白层面出现变化,组织 GSEA 的支持较弱。
NF-κB 在细胞和组织蛋白层面出现变化,但整体基因集富集并不显著。
优先级
若下一轮实验的主要目标是解释抗炎表型,PPAR 可以作为优先验证对象。
”
这一选择还应接受另外几项检查。
首先,需要查看 PPAR 基因集中的核心富集基因。
标准化富集分数只告诉你,基因集合在排序中出现了怎样的集中趋势。
究竟哪些成员贡献了富集结果,还需要打开核心基因列表。
如果主要贡献来自与脂质代谢、炎症调节或细胞功能有关的成员,你就能提出更具体的生物学假说。
如果贡献主要来自与研究表型关系较弱的基因,则需要重新评估这条通路。
其次,需要核对富集分析的多重检验校正结果。
转录组分析常常同时检验大量通路。只看未经校正的 p 值,可能高估某些结果的可靠性。
论文正文报告了上述通路的标准化富集分数和 p 值,但未在这些结果描述中明确提供相应的校正后显著性数值。
因此,正式确定主要机制之前,你应查看完整 GSEA 输出,检查调整后的显著性以及结果对分析参数的敏感性。
然后,还需要确认 PPAR 的具体细胞来源。
肺组织转录组混合了多种细胞的表达信号。
如果治疗减少了肺组织中的某类炎症细胞,同时增加了另一类细胞,那么整体 PPAR 基因集的富集也可能受到细胞比例变化影响。
巨噬细胞内是否出现相同的 PPAR 反应,可以通过分选细胞、特定细胞群检测或细胞类型分辨的分析继续验证。
完成这些检查后,才有理由把实验资源集中到某个具体的 PPAR 成员上。
06选定 PPAR 后,论文提供了怎样的验证证据?
现在沿着论文中已有的实验重新看一次。
在 Figure 7 中,作者通过转录组观察到 PPAR 相关基因集合富集。
在 Figure 5 中,Western blot 显示 PPAR 蛋白水平在 BN@NF 处理后升高,双刺激条件下变化更加突出。

同一组实验里,NF-κB 总蛋白水平下降。
再向前看,巨噬细胞表型和细胞因子也发生了变化。
1PPAR 蛋白上升后,巨噬细胞表型随之改变
Figure 5d 的流式实验显示,炎症对照组中 CD86 阳性细胞比例为 55.25%,CD206 阳性比例为 1.42%。

BN@NF 单独处理后,这两个比例分别变为 44.35% 和 3.45%。
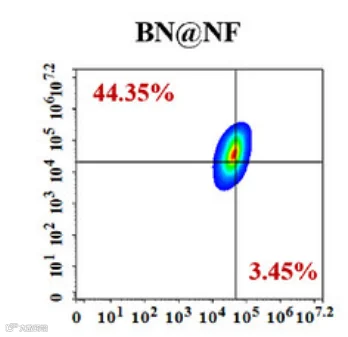
加入超声和交变磁场双刺激后,CD86 阳性比例下降至 10.38%,CD206 阳性比例增加至 9.76%。

这些变化支持巨噬细胞的炎症相关表型发生了调整。
PPAR 蛋白变化与这种调整出现在同一治疗体系中。
但 CD86 和 CD206 的变化仍属于表型观察。
要判断 PPAR 是否参与推动这一变化,需要在调节 PPAR 功能后再次测量这些标志物。
2炎症因子出现相同方向的治疗反应
Figure 5l、m 中,研究者检测了 IL-1β 和 IL-10。
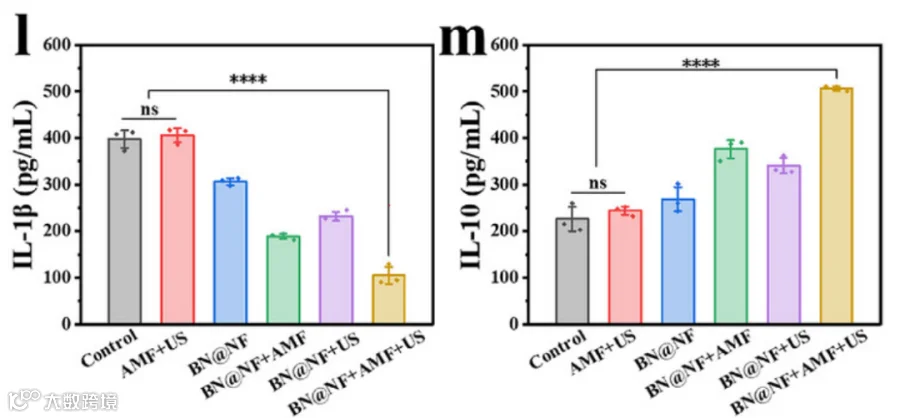
炎症对照组的 IL-1β 约为 400 pg/mL。
BN@NF 单独处理后,下降到约 310 pg/mL。
双刺激治疗后,进一步下降到约 105 pg/mL。
IL-10 则由对照组约 220 pg/mL 增加到双刺激组约 505 pg/mL。
这些变化与巨噬细胞标志物的改变相互呼应。
但治疗同时影响了许多细胞过程。
PPAR 上升可能参与抗炎作用,也可能是细胞状态改善后出现的下游反应。
因此,接下来需要主动改变 PPAR 活性,并观察炎症因子是否仍然按照原来的方向变化。
3动物实验进一步支持抗炎表型
Figure 7 中,作者在肺组织观察到了 CD86 和 CD206 的变化。

支气管肺泡灌洗液中,TNF-α、IL-1β 和 IL-17 水平下降,IL-10 水平上升。
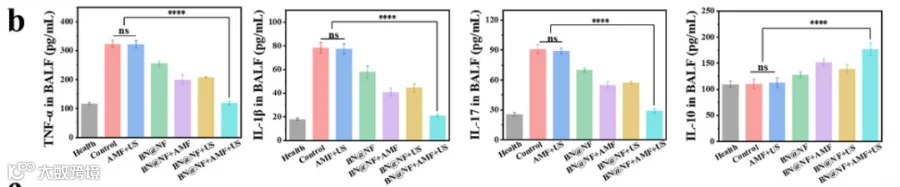
肺组织的 MPO 和 NF-κB 染色信号也减弱。
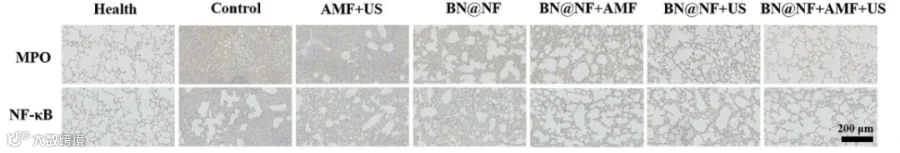
这些体内结果支持治疗能够减轻肺部炎症,并伴随免疫相关状态改变。
但动物实验还存在一个影响机制判断的因素。BN@NF 双刺激处理同时降低了肺部细菌负荷,病原体减少本身就可能减弱炎症刺激。
如果要进一步主张 PPAR 直接介导抗炎作用,研究者需要在控制感染负荷等因素的条件下,检验 PPAR 干预是否改变治疗效果。
截至论文正文所做的实验,PPAR 获得了转录组富集、蛋白变化和相关抗炎表型的支持。
但是正文没有报告 PPAR 功能的选择性阻断—救援验证。
下面的实验属于依据论文结果提出的补充研究设计。
07第一项补充实验:PPAR 蛋白增加以后,通路是否真的变活跃了?
Western blot 上的 PPAR 条带变深,说明相应蛋白丰度增加。
但 PPAR 属于核受体,其调控作用与配体结合、共调节因子及靶基因转录有关。
蛋白数量增加,不对应转录活性升高。
因此,下一轮实验应当首先确认通路是否处于活跃状态。
你可以在论文原有的巨噬细胞模型中,检测 PPAR 相关转录功能。
一种方法是采用经过验证的 PPAR 反应元件报告系统,观察处理前后报告信号是否变化。
同时,可以根据实际检测的 PPAR 亚型,选择已知靶基因开展表达验证。
这里需要注意,靶基因的选择应建立在具体亚型和细胞模型之上。
假设论文原有的 Western blot 确认检测的是 PPARγ,你就应围绕 PPARγ 的转录活性及其在巨噬细胞中的下游功能设计实验。
如果 BN@NF 双刺激后,PPARγ 报告活性上升,并且相关靶基因发生一致变化,就能支持通路功能被调节。
如果蛋白总量增加,而报告活性没有发生变化,则需要重新检查蛋白定位、配体状态、共调节因子以及测量时间点。
这项实验完成之后,PPAR 仍然是候选机制。
下一步要判断它是否参与炎症改善。
08第二项补充实验:阻断 PPAR,看看抗炎作用还能保留多少
你准备两类巨噬细胞。
一类保留正常的 PPAR 功能。
另一类通过遗传学方法降低候选 PPAR 亚型的表达或功能。
两类细胞接受相同的炎症刺激,并在对应条件下给予 BN@NF 双刺激处理。
实验分组至少需要包括:
|
|
|
|---|---|
|
|
|
|
|
|
|
|
|
|
|
|
四组完成处理后,分别收集细胞和培养上清。
先确认 PPAR 的干预效率,再测量其转录活性。
随后检测 NF-κB 信号状态、IL-1β、IL-10,以及 CD86、CD206 等巨噬细胞表型指标。
同时记录细胞活力。
这里需要比较的是治疗效应在两种 PPAR 条件下是否发生变化。
如果 B 组的 IL-1β 明显下降,D 组的下降幅度却减小,同时确认 PPAR 功能受到有效抑制,就可以支持 PPAR 参与了 BN@NF 的抗炎作用。
如果 D 组依然保留完整的抗炎反应,则需要检查 PPAR 干预是否充分,并考虑治疗可能通过其他信号系统发挥作用。
如果 PPAR 干预本身严重损伤细胞,炎症因子的变化也可能来自细胞数量或存活状态的改变。
因此,基因干预效率、细胞活力和基础炎症状态需要与治疗效果同时呈现。
此外,最好使用多种独立的遗传干预方案,并在适当情况下加入经过验证的药理学干预。
不同方法获得方向一致的结果,可以减少单一干预方式带来的解释偏差。
09第三项补充实验:恢复 PPAR 功能,抗炎反应能否重新出现?
假设第二轮实验得到预期结果。
PPAR 功能受到抑制后,BN@NF 对 IL-1β 的降低作用减弱,CD86 和 CD206 的变化也受到影响。
接下来可以恢复候选 PPAR 亚型的表达或功能。
在遗传干预背景下,重新表达具有正常功能的 PPAR 蛋白,再给予相同的治疗。
实验结束后,继续检测 PPAR 转录活性、NF-κB 信号以及炎症因子。
如果 PPAR 功能恢复后,BN@NF 的抗炎反应也随之恢复,就可以进一步支持这条候选途径的因果作用。
但救援实验仍需注意表达量。
如果外源 PPAR 蛋白远远超过生理水平,它本身可能改变巨噬细胞状态。
因此,应尽量控制表达水平,并通过适当的功能缺陷型对照检查救援是否依赖目标蛋白的相关功能。
救援成功后,你还可以进一步询问:
PPAR 是否通过 NF-κB 影响炎症因子?
这个问题需要另一组实验。
10第四项补充实验:PPAR 与 NF-κB,谁影响谁?
论文中,PPAR 蛋白上升,NF-κB 总蛋白下降。
两个指标的变化方向相反。
但从两个 Western blot 条带的变化,还无法确定上下游顺序。
可能的关系有几种。
PPAR 功能增强可能抑制 NF-κB 相关炎症信号。
也可能存在共同的上游调节因素,同时改变 PPAR 与 NF-κB。
另外,细胞炎症状态改善后,两种蛋白的丰度也可能随之调整。
如果希望证明 PPAR 位于 NF-κB 上游,就应首先在 PPAR 受抑制的条件下测量 NF-κB 活性。
这里要把检测对象选好。
NF-κB 的炎症相关活动涉及抑制蛋白状态、p65 的磷酸化以及核转位等过程。
因此,可以检测 p65 的核内定位、磷酸化水平或相应的转录活性。
假设正常细胞接受 BN@NF 治疗后,p65 核转位减少。
在 PPAR 被抑制的细胞中,这种减少明显减弱。
这会支持 PPAR 参与调节 NF-κB 活性。
但研究还可以继续向前,可以进一步针对 NF-κB 通路进行功能干预,检查其是否改变 PPAR 受抑制时的炎症表型。
这种实验能够帮助判断 NF-κB 是否参与传递 PPAR 对下游炎症因子的影响。
如果 PPAR 干预能够改变 NF-κB 活性,且下游干预可以相应改变炎症结局,机制链就获得了更多因果支持。
最终可能建立的路径是:
-
BN@NF双刺激 -
PPAR相关转录功能改变 -
NF-κB炎症信号受到调节 -
IL-1β下降、IL-10上升 -
巨噬细胞炎症表型改善
论文现有结果已经提供部分节点的变化证据,但这些因果连接还需要上述功能实验。
11第五项补充实验:肺组织中的 PPAR 信号究竟来自哪些细胞?
体外巨噬细胞实验如果获得阳性结果,还需要回到动物模型。
Figure 7 的转录组来自完整肺组织。
整块肺组织中的 PPAR 信号,可能来自巨噬细胞,也可能来自肺泡上皮细胞或其他细胞群。
治疗后,不同细胞类型的比例也可能发生变化。
因此,可以先检查肺组织中 PPAR 信号的细胞来源。
例如,使用适当的细胞标记与 PPAR 检测方法,观察表达变化主要发生在哪些细胞中。
也可以分离特定肺部细胞群,对候选 PPAR 亚型及其靶基因进行检测。
如果巨噬细胞中确实出现了与体外一致的 PPAR 功能变化,再开展更有针对性的体内功能干预。
对于研究巨噬细胞特异性机制,可以考虑适当的条件性遗传模型,但需要先确认所用遗传工具的细胞类型特异性和实际干预效率。
动物实验还需要处理感染负荷带来的影响。
BN@NF 治疗同时杀菌和减轻炎症。
假如干预 PPAR 后,肺部细菌负荷发生变化,炎症变化就可能同时受到感染程度影响。
因此,研究者需要同步测量细菌负荷、炎症因子、免疫细胞状态及肺组织病理损伤。
也可以增加感染负荷相近的比较条件,并使用互补实验区分细菌减少带来的继发性抗炎与免疫细胞内的直接调节作用。
完成这些实验以后,PPAR 在体内炎症改善中的具体贡献会逐渐清楚。
12如果当初选错通路,会发生什么?
回到最初的转录组结果。
作者发现了 1,092 个差异表达基因,并获得多条候选通路。
假设研究者只因为 NF-κB 与炎症有关,就立即决定沿着 NF-κB 开展全部机制研究。
接下来,他可能检测很多 NF-κB 相关蛋白,再根据变化结果画出一条信号通路图。
但 Figure 7 的整体转录组结果并没有为 NF-κB 基因集提供显著富集证据。
这不代表 NF-κB 没有参与治疗反应,它提示研究者应将现有证据限定在蛋白和炎症表型层面,并补充信号活性检测。
如果研究者直接选择 IL-17,也会遇到另一种情况。
转录组的 IL-17 基因集正向富集,灌洗液中的 IL-17 蛋白浓度却下降。
他需要检查具体富集基因、细胞来源和调节方向,才能继续提出机制假说。
如果选择 p53,研究者会发现 Figure 5 存在蛋白变化,但 Figure 7 的通路富集证据较弱。这样一来,验证工作就需要更多依靠明确的生物学假说和功能干预。
PPAR 则提供了另一种起点。
转录组富集、蛋白变化和抗炎表型之间存在一定的一致性。研究者可以围绕具体 PPAR 亚型开展功能验证。
四条通路都可能参与治疗反应,但它们当前所拥有的证据不同。
研究者应该让实验结果逐渐缩小候选范围。
如果 PPAR 阻断后抗炎作用没有变化,就需要重新考虑其必要性。
如果 PPAR 的功能干预改变了炎症表型,并且救援实验得到支持,就可以继续追踪下游信号。
每次实验结束后,候选机制都可能被保留、修正或排除。
13Mechanism Research Decision Protocol
这篇论文可以提炼成一套用于机制研究的通路选择程序。
-
第一阶段,确认表达变化。 先检查测序数据质量、样本重复、差异表达分析和统计阈值。 在这篇论文中,Figure 7d 报告了 1,092 个差异表达基因,这些基因构成了后续通路分析的起点。 -
第二阶段,查看候选生物学过程。 GO、KEGG 和 GSEA 将大量基因变化组织成可解释的功能类别。 Figure 7f、g 显示了细胞周期、细胞器相关过程及多条免疫调节通路, 研究者需要查看候选通路的基因成员和具体变化方向。 -
第三阶段,筛选具有相互支持证据的候选通路。 PPAR 的 GSEA 结果与已有蛋白变化相互呼应,因此获得较高的验证优先级。 但在正式选择前,仍需核对核心富集基因、统计校正结果、具体亚型和细胞来源。 -
第四阶段,验证通路功能。 研究者检测 PPAR 的转录活性及下游靶基因,确认观察到的蛋白变化是否对应功能变化。 如果通路活性没有改变,就需要重新检查其在机制链中的位置。 -
第五阶段,检验必要性。 通过遗传或其他经过验证的干预方式抑制候选通路,并再次测量治疗效果。 如果治疗的抗炎效应减弱,就获得了支持候选通路必要性的证据。 -
第六阶段,进行救援与特异性检验。 恢复候选通路功能,观察抗炎表型能否恢复。 同时控制非特异性细胞损伤和干预方式带来的影响。 -
第七阶段,确认上下游关系。 研究者继续干预 PPAR 和 NF-κB 等候选节点,判断信号变化的先后和功能依赖关系。 -
第八阶段,回到疾病模型。 在动物组织中确认目标细胞类型,并检验相关通路对炎症和病理损伤的贡献。 此时,还需要同步检查细菌负荷等可能影响炎症的因素。
整个过程可以表示为:
-
差异表达基因 -
GO / KEGG / GSEA -
候选通路及核心基因 -
统计证据和生物学一致性检查 -
确定具体通路成员及细胞来源 -
蛋白与通路活性验证 -
功能阻断 -
救援实验 -
上下游关系验证 -
动物模型中的机制检验