


兴趣是探索与学习的基础,兴趣减退是抑郁症等精神疾病的核心致残症状。慢性应激可诱发兴趣减退,且该过程独立于快感缺失,但其神经机制尚不明确。腹内侧前额叶皮层(vmPFC)是动机调控的关键脑区,慢性应激持续损害其功能;而梨状皮层(PiC)近年被发现参与情绪与应激应答,但vmPFC-PiC环路是否调控兴趣行为仍缺乏直接证据。
2026年8月26日,南京医科大学周其冈教授团队在《Molecular Psychiatry》上发表“A prefrontal cortex‑piriform cortex circuit mediates diminished interest”的研究论文。该研究首次揭示一条编码兴趣的皮层通路:vmPFC中存在投射至PPC与APC的两类谷氨酸能亚群,仅vmPFCglu-PPC环路主导兴趣驱动的探索行为,其编码依赖于PPC神经元AMPA受体介导的簇放电。慢性应激选择性削弱该突触传递、抑制簇放电,导致兴趣减退,而靶向激活该环路可挽救行为缺陷。该发现为精神疾病中的兴趣减退提供了环路机制与干预靶点。

研究建立了定量评估兴趣减退的探索参与行为范式(EET),通过设置多形态随机摆放物体并自动化量化小鼠物体探索、趋近与嗅探等行为,有效规避主观偏差与习惯化干扰,且检测稳定性良好(图1A)。经过4周慢性不可预测温和应激(CUMS)处理的小鼠表现出显著抑郁样行为:悬尾实验(TST)不动时间增加,糖水偏好实验(SPT)糖水偏好程度下降(图1E、1G)。同时EET检测的物体支撑后立等兴趣探索行为明显降低,且该兴趣缺陷可在应激撤除后持续至少7天,而小鼠总运动能力、新物体识别记忆均未受影响,排除运动与记忆损伤干扰(图1B-D)。进一步研究分析兴趣减退与经典抑郁样表型之间的关联,在CUMS小鼠中,物体支撑后立行为与悬尾实验不动时间(行为绝望)、糖水偏好实验糖水偏好(快感缺失)均不存在相关性(图1F、1H),提示兴趣减退与上述抑郁表型具有部分可分离性。纵向时序监测发现不同行为缺陷的发生时间存在差异:EET检测到的兴趣缺陷在CUMS处理第2周即出现(图1I),早于糖水偏好下降(第3周,图1K)以及悬尾不动时间升高(第4周,图1J);旷场实验的运动能力全程保持稳定(图1L)。综上,EET可以检测慢性应激状态下持久发生、时间进程独立于快感缺失/行为绝望的物体定向兴趣减退。

图1 EET范式揭示:兴趣减退是慢性应激下一种早期且独立的行为维度
研究利用FosTRAP2系统标记EET兴趣探索行为中激活的神经元,给予4-OHT实现行为活化神经元的永久荧光标记,结合FDISCO组织透明化与光片显微镜完成全脑三维成像(图2A)。相较于笼内对照组,EET‑TRAP小鼠腹内侧前额叶皮层(vmPFC)、眶额叶皮层(ORB)、后梨状皮层(PPC)TRAP阳性神经元显著升高(图2B‑D)。再次开展EET行为后的c‑Fos共染验证显示,vmPFC、ORB、PPC的TRAP⁺/c‑Fos⁺双标神经元占比上升,其中vmPFC神经元重激活效应最强(图2E‑F、2H),说明在参与兴趣相关行为时,这些神经元集群发生强烈重激活;而APC脑区未观察到该变化(图2G)。vmPFC与PPC的双标细胞占比和兴趣探索行为水平呈正相关,ORB不存在该相关性(图2I‑K),且仅EET‑TRAP组存在vmPFC‑PPC神经元集群协同激活特征(图2L)综上,vmPFC为兴趣行为最关键的皮层脑区,兴趣驱动的探索行为可同步募集PPC神经元协同参与。
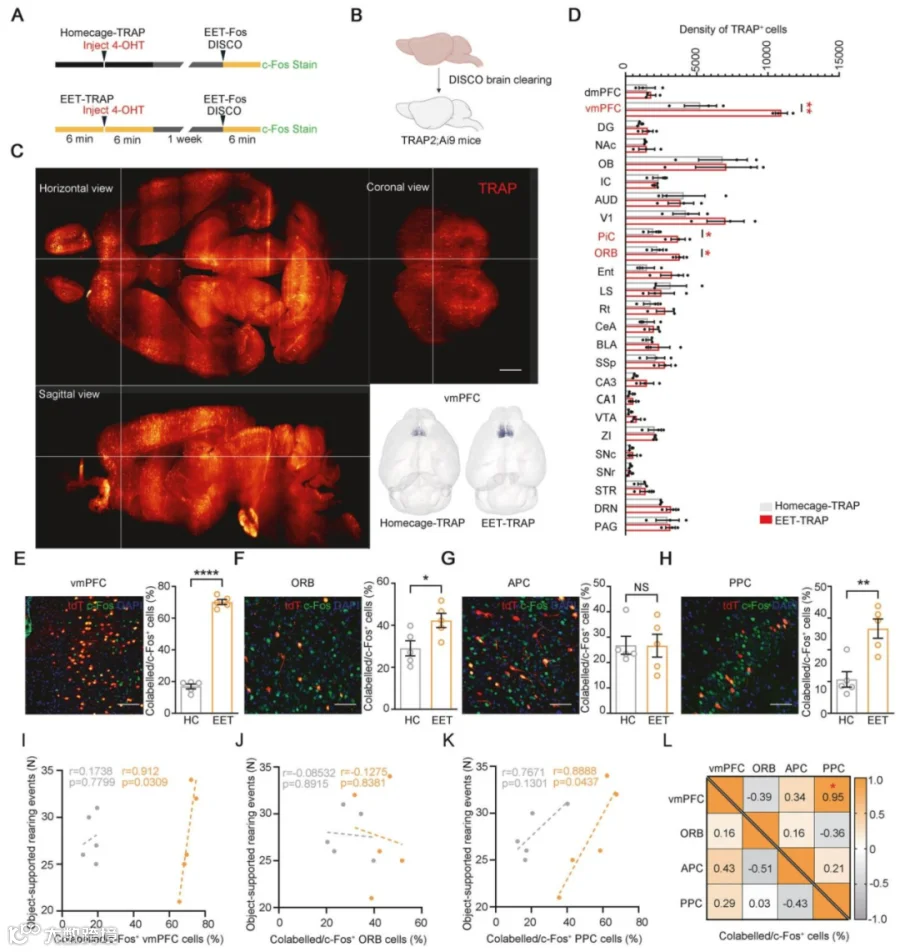
图2 兴趣相关行为优先募集vmPFC与PPC神经元集群
实验鉴定EET标记的vmPFC神经元绝大多数为CaMKIIα阳性兴奋性神经元,研究解析vmPFCglu对探索性兴趣的因果调控作用。在CaMKIIα‑Cre小鼠vmPFC注射Cre依赖GCaMP6f病毒,结合EET行为开展在体双光子钙成像(图3A、3B),结果显示相较于笼内静息状态,物体探索时vmPFCglu神经元钙事件频率、持续时间显著上升,提示该群神经元参与兴趣相关行为(图3C、3D)。采用hM4Di化学遗传抑制vmPFCglu神经元(图3E‑I),小鼠EET范式下物体支撑后立行为显著下降,总运动能力不受影响,证明vmPFCglu神经元是兴趣探索行为的必要组分(图3J、3K)。进一步在CUMS慢性应激小鼠中利用hM3Dq实现化学遗传激活(图3L‑N),CNO给药可提升该神经元集群活性(图3O‑P),并逆转应激诱导的物体支撑后立行为缺陷,同时不改变小鼠运动水平,表明激活vmPFCglu神经元足以改善慢性应激引发的兴趣减退表型(图3Q‑R)。

图3 vmPFCglu神经元的活动双向调控兴趣相关行为
为验证共同激活的vmPFC与PPC之间是否存在直接投射联系(图2L),研究检测了vmPFCglu神经元向梨状皮层(PiC)的投射。对CaMKIIα‑Cre小鼠vmPFC脑区注射AAV-hSyn-DIO-mGFP(图4A),观察到GFP阳性纤维投射至前梨状皮层(APC)与后梨状皮层(PPC)(图4B‑D);利用AAV‑hSyn‑DIO‑mGFP‑2A‑Synaptophysin‑mRuby病毒进一步验证(图4E、4F),发现APC、PPC均可见GFP阳性轴突纤维与mRuby标记的突触末梢,且PPC的突触末梢信号更丰富(图4G、H)。顺行跨单突触示踪(AAV‑DIO‑TK‑GFP+HSV‑ΔTK‑tdTomato)同样证实vmPFC与APC、PPC存在单突触连接,同时检出丘脑带旁核、终纹床核等多个下游靶脑区(图4I‑N)。在vmPFCglu神经元表达ChR2‑mGFP,全细胞膜片钳记录(图4O)显示对轴突进行光刺激后,APC/PPC神经元上可记录到兴奋性突触后电流(EPSC);该电流可被TTX消除,4-AP可恢复突触释放,而DNQX可完全阻断该电流,证明该环路具备功能性单突触兴奋性传递(图4P)。进一步向APC、PPC分别注射不同荧光的RetroAAV开展双重逆行标记(图4Q),vmPFC内投射至APC与PPC的两类神经元几乎不存在共定位,仅有极少双标细胞(图4R‑T),提示vmPFCAPC与vmPFCPPC为投射偏向相互独立的谷氨酸能神经元亚群。
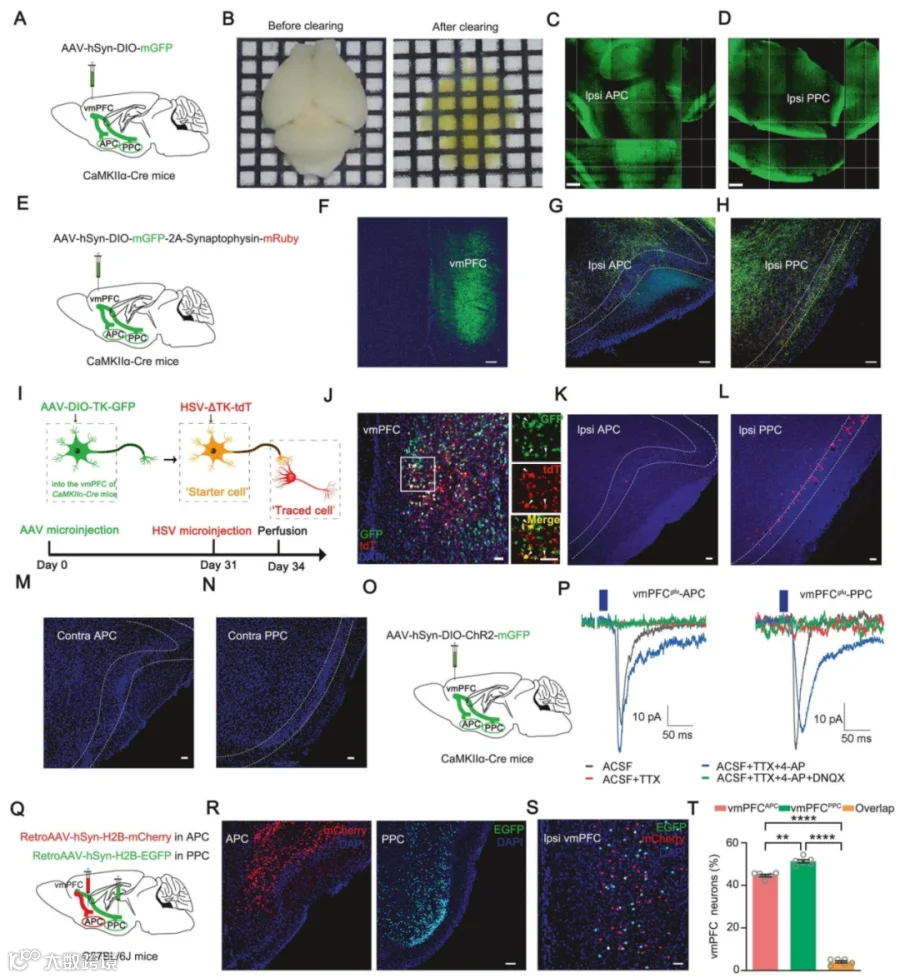
图4 具有投射偏向性的vmPFCglu神经元亚群优先支配APC与PPC
结合逆行病毒标记、荧光激活细胞核分选(FACS)与单细胞核RNA测序,解析vmPFCAPC与vmPFCPPC神经元的分子特征。无监督聚类得到L2/3、L5/6、第6层皮质‑丘脑投射3类主要兴奋性神经元,vmPFCAPC与vmPFCPPC绝大部分归属于L2/3神经元亚群,深层皮层来源占比很低,Cux2、Bcl11b、Foxp2等层特异性标志物的表达模式进一步验证该结果(图5A‑C)。对L2/3层两类神经元开展转录组比较,差异基因分析显示二者表达谱显著分离(图5D);二者虽均富集突触组装通路,但vmPFCAPC侧重突触组装与结构构建,vmPFCPPC富集活动依赖性可塑性、轴突导向及细胞黏附相关通路(图5E)。火山图显示vmPFCAPC高表达Rorb、Srrm2、Atp6v0b等参与皮层信息整合、感觉-环境背景处理的基因,vmPFCPPC高表达Cdh13、Nr4a3、Sema3e等调控突触组织与活动依赖信号传导的基因(图5F)。将两套基因集与抑郁症风险基因数据集比对,仅vmPFCPPC高表达基因存在交集,得到候选基因Cdh9、Cdh13;免疫荧光证实二者在vmPFCPPC中的共标记比例显著高于vmPFCAPC(图5G-K)。综上,源自L2/3层的vmPFCAPC和vmPFCPPC兴奋性神经元具备截然不同的转录调控程序,且与抑郁症风险的关联程度存在差异。

图5 投射至APC与PPC的vmPFCglu神经元具有迥异的分子表达谱
利用化学遗传双向操控CaMKIIα‑Cre小鼠的vmPFCglu‑PPC与vmPFCglu‑APC环路(图6A‑C),激活vmPFCglu‑PPC环路可提升EET兴趣探索行为,抑制该环路则使兴趣行为降低;该环路调控不改变悬尾不动时间、糖水偏好、运动能力、记忆及基础嗅觉功能,排除多项混杂因素干扰(图6D‑J)。而同等干预vmPFCglu‑APC路未产生可检测行为效应,推测与vmPFC对APC投射强度偏弱、两类亚群转录谱差异相关(图5E)。激活vmPFCglu‑PPC环路2h后PPC批量RNA测序显示Gria1(GluA1编码基因)特异性上调,免疫荧光证实PPC神经元及突触后致密区GluA1蛋白表达升高,GSEA分析排除嗅觉通路改变,体现环路行为特异性(图6K‑N)。在体电生理记录表明,接收vmPFC输入的PPC神经元在EET探索期间簇放电升高、紧张性放电不变,物体支撑后立行为启动时刻伴随放电快速增强;对vmPFC轴突末梢施加100 Hz短时光遗传刺激,可选择性上调PPC神经元簇放电而不影响紧张性放电(图6O‑S)。

图 6 vmPFCglu-PPC-AMPA受体环路与簇放电选择性调控兴趣相关行为
进一步分别在CUMS应激2周(仅出现兴趣减退)与4周(全套抑郁样行为显现)两个时间点解析环路损伤特征(图1I‑K)。HSV跨突触示踪显示,应激2周时仅接收vmPFC输入的PPC神经元数量选择性下降,而vmPFC其他主要投射靶区基本不受影响,该损伤持续至第4周,此时才出现vmPFC下游多脑区广泛重构(图7A、B),提示vmPFC‑PPC为应激早期优先受损环路。在体单细胞记录显示,CUMS处理2周小鼠PPC靶神经元簇放电显著下调、紧张性放电维持正常;4周时簇放电损伤进一步加剧,同时伴随紧张性放电轻度降低(图7C‑G)。借助c‑fos‑tTA活性依赖标记系统标记EET行为激活的vmPFC神经元集群,验证该标记神经元具备完整电生理功能(图7H‑L);对vmPFC投向PPC的轴突末梢给予光遗传高频刺激(oHFS),可逆转4周CUMS小鼠的兴趣减退表型,却不改善行为绝望、快感缺失及运动指标(图7M‑Q)。综上,慢性应激可早期、持续性损伤vmPFCglu‑PPC环路,介导选择性兴趣相关行为缺陷,靶向该环路轴突末梢的功能重激活足以挽回该行为异常。

图7 应激诱发的兴趣减退由vmPFCglu‑PPC环路受损所介导
本研究建立了自动化行为范式量化慢性应激下探索性兴趣的变化,并鉴定出vmPFCglu投射至APC与PPC的两类亚群,二者在投射靶区与转录组上存在差异。功能上,仅vmPFCglu-PPC环路主导调控探索性兴趣,其作用依赖于PPC神经元中AMPA受体介导的簇放电;慢性应激可特异性削弱该突触连接、抑制簇放电,导致持续性兴趣缺损。该研究揭示了一条易受应激损伤、独立于奖赏处理的皮层通路,为理解精神疾病中的兴趣减退提供了环路机制。
本文使用的工具病毒布林凯斯均可提供:

同时布林凯斯也可提供各类定制服务请联系小布:18971216876(微信同号)或者咨询所在区域的销售经理获取更多信息。
活动
EVENTS
集锦

关于布林凯斯
