


线粒体自噬的因果验证,从观察线粒体变化,到证明它参与炎症控制
一、一颗受损的线粒体,最初是怎样引起研究者注意的?
细胞里的线粒体会不断发生变化。有些线粒体伸长,与附近的线粒体融合;有些从中间分裂,形成更小的片段。受到损伤时,一部分线粒体逐渐失去膜电位,原本维持在内膜两侧的电化学梯度开始消散。
这样的线粒体留在细胞里,会发生什么?
20世纪末,研究者已经能够在显微镜下观察线粒体的形态变化,也知道溶酶体能够降解细胞内部的物质。1998年前后,Lemasters 团队在相关研究中观察到,一些线粒体发生去极化,随后进入溶酶体相关的降解过程。
这让一个原本宽泛的问题变得具体:
细胞能否辨认出状态不佳的线粒体,并将它们单独清除?
2005年,John Lemasters 在论文中提出使用 mitophagy 一词描述这种选择性的线粒体自噬过程。这个名称强调了一个细节:细胞在降解过程中可以选择特定的细胞器,线粒体能够成为被识别和清除的对象。
但当时还有一个问题没有解决。
即使在显微镜下看到线粒体进入了溶酶体,研究者仍然需要解释:受损线粒体究竟怎样被辨认出来?细胞为什么优先处理这些线粒体?
2008年,Parkin 的移动给出了新的线索
在健康细胞中,Parkin 通常主要分布于胞质。
2008年,Narendra 等研究者使用线粒体解偶联剂 CCCP,使线粒体膜电位下降,随后观察 Parkin 的位置。
Parkin 开始向受损线粒体聚集。随着处理继续,部分线粒体被自噬系统清除。
这一系列观察将 Parkin 与损伤线粒体的选择性清除联系起来,也使研究者开始沿着 Parkin 追踪上游识别信号。
到了2010年前后,多个研究团队发现,PINK1 参与控制 Parkin 向受损线粒体的募集。当线粒体膜电位下降,正常的蛋白导入与降解过程受到影响,PINK1 可以在线粒体外膜积累,并促进后续的 Parkin 活化。
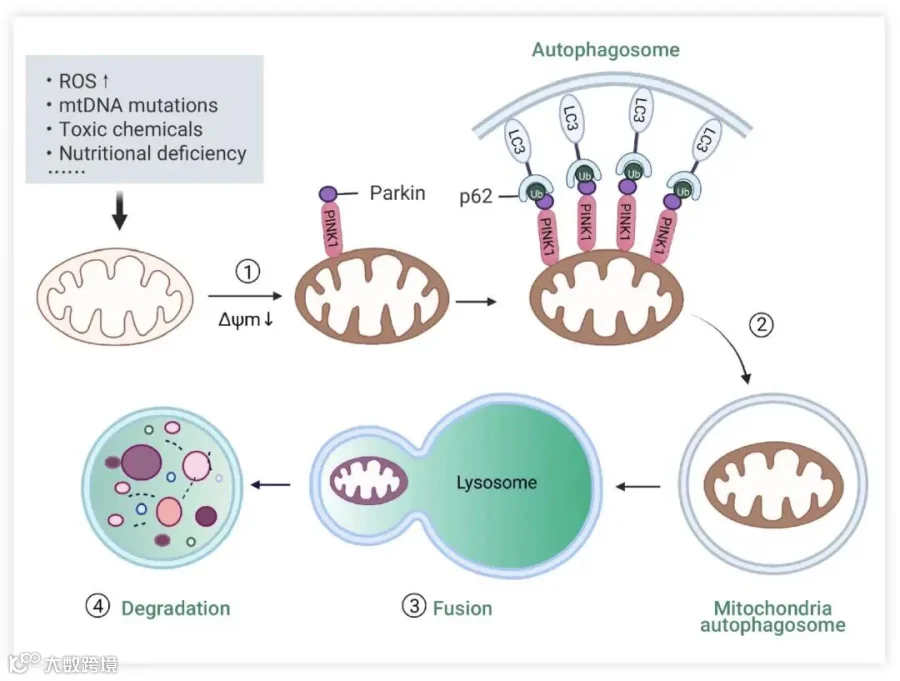
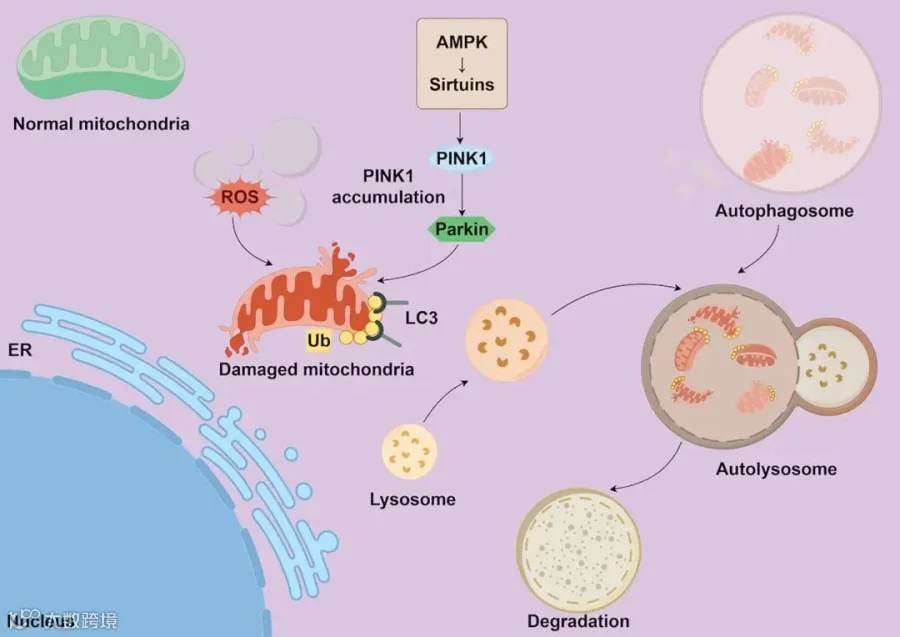
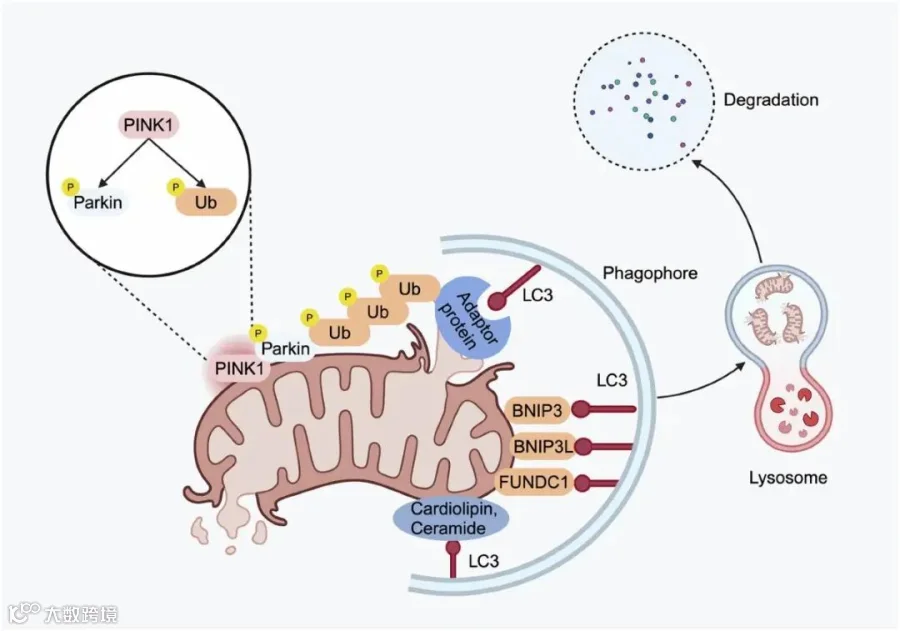
图片来源网络
线粒体自噬研究中的典型观察对象:受损线粒体的识别、Parkin 募集、自噬体包裹和溶酶体降解。
这条机制随后逐渐清楚。受损线粒体表面积累的 PINK1 促使 Parkin 参与泛素化过程,相关信号进一步招募自噬受体和自噬膜。线粒体被包裹进自噬体,最终由溶酶体完成降解。
研究者开始能够沿着一颗受损线粒体的去向,追踪多个连续发生的细胞事件。
但另一种情况也经常出现。
研究者检测到 Parkin 增加,或者发现 LC3 表达升高,随后就提出线粒体自噬增强。然而,Parkin 的蛋白总量增加,并不保证它已经募集到线粒体表面。
LC3增加也可能发生在自噬体大量形成之后,或者自噬体无法顺利降解之时。两种过程都可能让 LC3 信号增强,线粒体的最终去向却截然不同。
因此,线粒体自噬的验证逐渐形成了几个需要分别回答的问题。
线粒体有没有受到损伤?
细胞有没有启动识别和包裹过程?
受损线粒体有没有进入溶酶体?
这些线粒体最终有没有被降解?
再向前一步,还要问:如果把这个清除过程阻断,原来观察到的疾病改善是否会消失?
最后这个问题,将线粒体自噬的检测带进了因果机制研究。
二、为什么研究炎症时,研究者开始关注线粒体自噬?
巨噬细胞受到细菌成分刺激后,会启动炎症信号。

细胞内的 NF-κB 等信号系统发生变化,随后一批炎症相关基因的表达升高,炎症因子逐渐释放出来。
与此同时,细胞内部的线粒体也可能承受压力。膜电位下降、氧化还原状态改变、线粒体活性氧增加,这些变化可能进一步影响炎症信号。受损线粒体还可能释放线粒体 DNA 等危险相关分子,使细胞持续接收损伤信号。
细胞需要处理这些受损线粒体。
如果线粒体自噬顺利进行,一部分功能受损的线粒体会进入溶酶体降解途径。随着受损线粒体减少,某些炎症放大信号也可能随之减弱。
线粒体自噬因此成为连接线粒体质量控制与先天免疫反应的一条候选机制。它在不同炎症模型中的作用可能存在差异,具体效果取决于细胞类型、刺激条件和疾病阶段。
这一背景也带来了一个实验困境。
假设某种治疗之后,巨噬细胞的线粒体膜电位恢复了,炎症因子也下降了。研究者可以提出两种解释。
一种是,治疗促进了受损线粒体的清除,随后炎症反应减弱。
另一种是,治疗首先降低了炎症或氧化应激,线粒体因此受到保护,膜电位逐渐恢复。
两种解释都会产生相似的实验结果,单独观察膜电位和炎症因子,还无法判断哪条变化发生在前面。
于是,研究者需要继续追踪线粒体的实际去向,并主动干预这一过程。
这就是线粒体自噬因果验证的研究背景。
三、回到实际论文:作者为什么选择线粒体自噬?
2026年,Luo 等人在《Advanced Science》发表了这篇研究。他们开发了一种由硼纳米片和钕掺杂磷化铁组成的纳米酶 BN\@NF,并希望借助超声与交变磁场治疗细菌性肺炎。
在论文前半部分,研究者先解决细菌清除问题。
材料受到外部刺激后,能够增强活性氧相关反应,消耗谷胱甘肽,并破坏细菌膜及生物膜。Figure 4 显示,在双刺激条件下,耐药肺炎克雷伯菌和耐甲氧西林金黄色葡萄球菌的存活率显著下降。
到了动物实验,肺部菌落数量也随着治疗下降。Figure 6 中,双刺激处理组的肺组织细菌负荷已经接近检测下限。
细菌减少了,肺部炎症会怎样?
细菌性肺炎的组织损伤来自多个相互影响的过程。细菌在肺内生长并释放刺激信号,免疫细胞随之聚集。随着炎症持续,肺泡壁增厚,炎症细胞进入肺组织,原本清晰的肺泡结构逐渐受到破坏。
杀菌治疗能够减少病原体刺激,但研究者还希望治疗过程中受损的肺组织能够逐渐恢复。因此,论文将研究延伸到巨噬细胞的炎症状态。
巨噬细胞可以参与清除病原体,也会释放多种炎症因子。它们的功能状态与组织炎症和修复过程密切相关。作者进一步提出:BN\@NF 可能通过调节线粒体自噬,改善线粒体稳态,进而减轻巨噬细胞炎症。
这里需要把作者的假说和已经证明的结果分开。
在进入 Figure 5 之前,研究者已经拥有较充分的材料催化与抗菌证据。线粒体自噬是否被增强、它是否介导抗炎作用,需要新的细胞实验回答。
先看作者准备验证的机制链
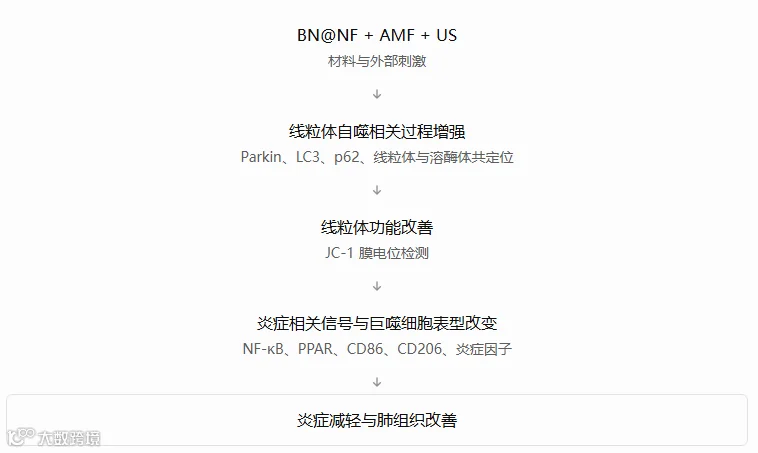
这是一条待验证的因果链。
作者在不同实验中观察到了链上多个节点的变化,节点之间的因果箭头需要分别检验。
下面沿着 Figure 5 的研究内容,看看作者实际做了什么。
四、文献怎样一步步获得线粒体自噬相关证据?
第一项观察:治疗后,巨噬细胞的炎症表型发生了变化
作者先使用 RAW264.7 小鼠巨噬细胞开展体外实验。
在引入复杂机制检测之前,他们用不同浓度的 BN\@NF 处理细胞,测量细胞活力。Figure 5a 显示,随着材料浓度升高,细胞活力逐渐下降,但在测试的最高浓度 400 μg/mL 下仍保持在 85% 以上。

这项实验为后续比较提供了一个基本条件:在所测试的细胞浓度范围内,处理后的细胞仍有较高比例保持活性。
接下来,作者用 LPS 刺激巨噬细胞,使其进入促炎状态。
实验方法部分给出了具体条件:LPS 浓度为 50 μg/mL,刺激 12 小时,随后加入 BN\@NF 并进行相应处理。研究者还设置了 IL-4 阳性对照,用于观察抗炎相关的巨噬细胞表型。
处理结束后,他们检测 CD86 和 CD206。
CD86 常用于观察促炎相关的巨噬细胞状态,CD206 则经常被用于评价修复或抗炎相关状态。两个指标能够提供表型信息,但单个标志物的变化只能反映细胞状态的一部分。
Figure 5d 的流式结果出现了明显差异。
对照组中,CD86 阳性细胞占 55.25%,CD206 阳性细胞占 1.42%。
加入 BN\@NF 后,CD86 阳性比例下降到 44.35%,CD206 阳性比例上升到 3.45%。
在材料与双刺激联合处理组中,CD86 阳性比例进一步下降至 10.38%,CD206 阳性比例升至 9.76%。
细胞表面标志物出现了方向一致的变化。作者据此认为,材料能够推动巨噬细胞向抗炎相关的表型转变。
但这时还无法判断是什么机制引起了变化。材料可能直接影响炎症信号,也可能改变细胞的代谢与氧化应激状态。
线粒体质量控制是其中一个可能的解释。因此,论文随后转向线粒体和溶酶体。
第二项观察:线粒体与溶酶体的荧光信号开始重叠
Figure 5f 中,作者使用两种荧光探针观察细胞内的细胞器。

(f) Confocal fluorescence images of mitochondrial (MitoTrackerTM Green) and lysosomal (LysoTrackerTM Red) staining in treated RAW264.7 cells.
MitoTracker Green 标记线粒体,LysoTracker Red 标记酸性溶酶体相关结构。
如果分别拍摄两个荧光通道,能够看到线粒体和溶酶体各自分布在哪里。再把两张图合并,两个信号重叠的区域就会显现出来。
作者在 RAW264.7 细胞中观察到,BN\@NF 处理之后,溶酶体荧光强度升高。加入外部刺激后,合并图像中的荧光重叠更加突出。
Figure 5g 的定量结果显示,对照组溶酶体平均荧光强度约为 16 个任意单位,BN\@NF 单独处理后约为 50,双刺激处理后约为 57。线粒体总荧光强度的变化相对较小。

(g) Quantification of MFI of mitochondria and lysosomes in different treatment groups.
作者认为,这些现象与线粒体自噬增强相一致。
不过,两个荧光信号重叠也存在几种可能。一部分线粒体可能已经进入溶酶体降解过程;一部分线粒体可能只是靠近溶酶体。溶酶体数量增加、酸性改变或荧光探针摄取变化,也可能让合并图像中的信号增强。
这组实验可以提示线粒体与溶酶体之间的空间关系发生变化。要确认线粒体已经进入降解过程,还需要测量线粒体自噬通量。这也解释了为什么共定位实验常常需要与其他检测共同使用。
第三项观察:线粒体的膜电位开始恢复
作者继续使用 JC-1 探针观察线粒体状态。
线粒体内膜两侧存在电化学梯度。正常情况下,膜电位能够支持线粒体进行能量转换。当线粒体受到严重损伤时,膜电位可能下降。
JC-1 的荧光行为与膜电位有关。
在相应染色条件下,膜电位较高时,JC-1 更容易形成发出红色荧光的聚集体;膜电位降低时,绿色单体信号所占比例通常增加。
Figure 5h、i 中,作者利用 CCCP 造成线粒体膜电位下降,随后比较各组的 JC-1 荧光。
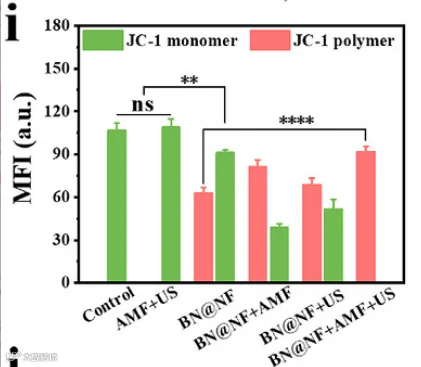
对照及单独双刺激条件下,绿色信号占据优势。加入 BN\@NF 之后,红色信号逐渐增强。在 BN\@NF 与双刺激联合处理组,红色聚集体信号增加最为突出。
作者据此认为,BN\@NF 处理改善了受损线粒体的膜电位状态。这个结果与前面的共定位实验形成了联系。
共定位实验提示线粒体与溶酶体的空间关系发生变化。JC-1 则显示,处理后的线粒体群体呈现出较好的膜电位状态。
但两项实验之间还缺少一个直接观察:那些膜电位较低的线粒体,是否已经被选择性清除?
一种可能是,治疗改善了原有线粒体的功能,让它们重新恢复膜电位。细胞内线粒体的融合、分裂和新生,也可能改变 JC-1 的最终结果。
研究者因此继续检测与自噬过程相关的蛋白。
第四项观察:Parkin、LC3 与 p62 出现方向不同的变化
Figure 5j、k 中,作者使用 Western blot 检测 Parkin、LC3、p62,同时检测 p53、PPAR 和 NF-κB。
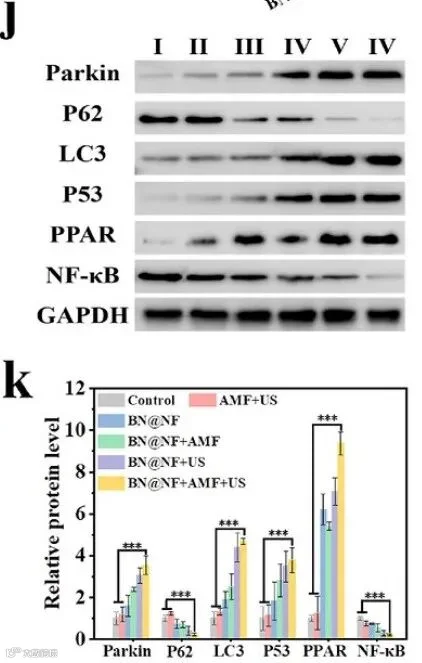
(j) Western blot analysis of mitophagy-related proteins (Parkin, P62, LC3, P53, PPAR, and NF-κB) in RAW264.7 cells after treatment with different stimuli (I, Control; II, AMF+US; III, BN@NF; IV, BN@NF+AMF; V, BN@NF+US; VI, BN@NF+AMF+US). (k) Quantification of relative protein levels of mitophagy-related markers. Levels of (l) IL-1β and (m) IL-10 in the supernatant of treated RAW264.7 cells. PBS treatment was used as the control group.
其中,最直接与线粒体自噬相关的三个指标是 Parkin、LC3 和 p62。
Parkin 参与受损线粒体的识别和泛素化相关过程。
LC3 与自噬体膜形成有关。在自噬过程中,LC3-I 可以发生脂质化,转化为与自噬膜结合的 LC3-II。
p62 能够参与识别泛素化货物,并将其连接到自噬系统。随着货物进入降解途径,p62 也可能被降解。
论文观察到,BN\@NF 相关处理组的 Parkin 和 LC3 表达上升,p62 表达呈下降趋势。双刺激条件下,这些变化更加突出。
三个指标出现了与自噬活跃状态相符的变化。
然而,读到这里还需要仔细检查 Western blot 的解释。
Parkin 总量增加,尚不能确认 Parkin 已经转移到线粒体表面。
LC3 总量增加,也无法单独区分自噬体形成增加与降解受阻。
对于 LC3,LC3-II 的独立检测、合适的内参和溶酶体降解控制能够进一步提高解释能力。
p62 下降提供了货物周转的线索,但 p62 本身的转录与降解也受多个过程影响。
而且,研究者需要区分一般自噬增强与选择性线粒体自噬增强。即使细胞总体自噬活性升高,也不代表线粒体是主要的被降解货物。
因此,Parkin、LC3、p62 这组三指标适合用于提出和支持线粒体自噬假说,进一步确认这一假说需要线粒体定向的动态检测。
第五项观察:炎症信号与细胞因子也发生变化
在同一组 Western blot 实验中,作者观察到 PPAR 蛋白表达上升,NF-κB 总蛋白表达下降,p53 也呈上升趋势。
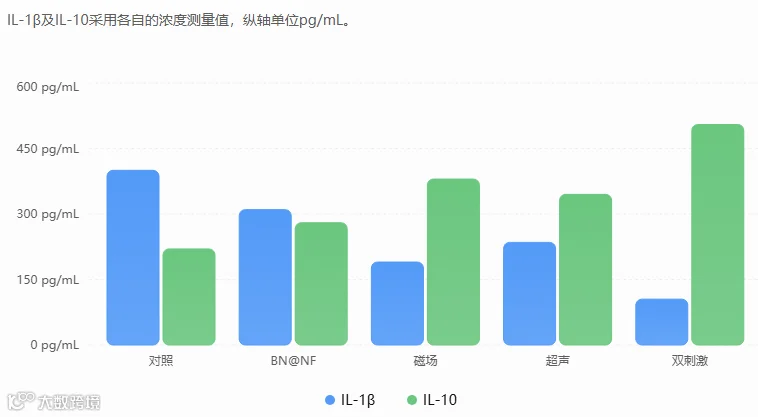
随后,Figure 5l、m 检测了细胞培养上清中的 IL-1β 和 IL-10。
IL-1β 是典型的促炎细胞因子。IL-10 则参与抑制和调节炎症反应。
作者报告,对照组的 IL-1β 约为 400 pg/mL,BN\@NF 单独处理后降至约 310 pg/mL,双刺激联合处理后进一步降至约 105 pg/mL。
IL-10 的变化方向相反。对照组约为 220 pg/mL,BN\@NF 单独处理后约为 280 pg/mL,双刺激联合处理后增加至约 505 pg/mL。
到了这一步,Figure 5 的实验结果已经能够彼此联系起来。
双刺激处理后,线粒体与溶酶体的共定位增加,Parkin、LC3 和 p62 出现了自噬相关变化。细胞的线粒体膜电位改善,炎症因子向较低促炎、较高抗炎的方向变化,CD86 和 CD206 也出现了相应改变。
作者据此提出,BN\@NF 可能借助线粒体自噬调节巨噬细胞炎症。
但如果把这些结果全部放到同一张机制图中,会发现一个尚未验证的连接。
已经分别检测了线粒体相关过程和抗炎表型,还需要直接检验:
当线粒体自噬受到选择性阻断时,BN\@NF 是否仍然能够降低 IL-1β、提高 IL-10,并改变 CD86/CD206 表型?
Figure 5 的结论边界
Figure 5 支持线粒体自噬相关变化与抗炎表型之间的联系;线粒体自噬介导抗炎作用的必要性仍待验证。
”
五、Figure 7:动物实验把这条机制链推进到了哪里?
作者随后将研究转向小鼠细菌性肺炎模型。
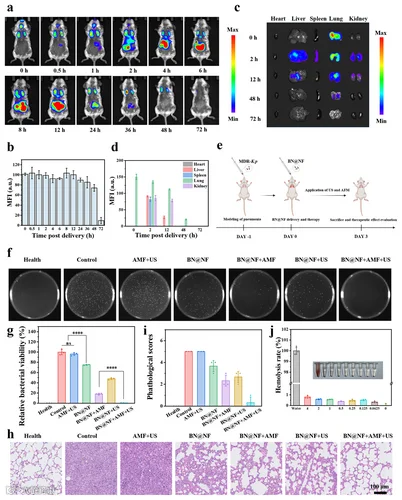
In vivo biodistribution and therapeutic evaluation of nebulized BN@NF in a murine bacterial pneumonia model.
在 Figure 6 中,双刺激治疗组的肺组织细菌负荷大幅下降,肺组织病理评分也从感染对照组的约 5.0 降到约 0.4。
到了 Figure 7,作者开始检查肺内的免疫细胞与炎症信号。

In vivo inflammation modulation and gene expression analysis of BN@NF in a murine bacterial pneumonia model.
研究者对肺组织进行免疫荧光染色,观察 F4/80、CD86 和 CD206。感染对照组肺组织中出现较多 F4/80 阳性巨噬细胞,同时伴随较强的 CD86 信号。治疗后,CD86 信号减弱,CD206 信号增强。
支气管肺泡灌洗液中的炎症因子也发生变化。双刺激治疗组的 TNF-α 约为 110 pg/mL,IL-1β 约为 20 pg/mL,IL-17 约为 30 pg/mL,均低于感染对照组。IL-10 则由约 110 pg/mL 上升到约 178 pg/mL。
肺组织的 MPO 和 NF-κB 免疫组织化学染色也有所减弱。
这些结果让 Figure 5 中观察到的免疫表型,在动物肺炎模型中得到了进一步支持。
但这里还有一条必须保留的解释路径:治疗同时显著降低了肺内的细菌负荷。病原体减少,炎症刺激可能随之减弱。因此,动物中的炎症改善可能同时来自抗菌作用和直接免疫调节作用。
转录组提供了什么新信息?
Figure 7d–k 中,作者比较了感染对照组与 BN\@NF 双刺激治疗组的肺组织转录组。
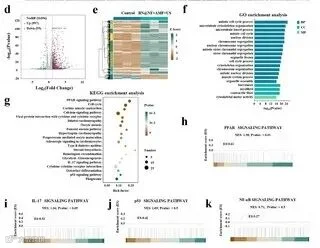
In vivo inflammation modulation and gene expression analysis of BN@NF in a murine bacterial pneumonia model.
分析共得到 1,092 个差异表达基因,其中上调 997 个,下调 95 个。进一步的通路分析涉及 PPAR、IL-17、p53 和 NF-κB 等。
其中,PPAR 通路的基因集富集分析结果较为突出,报告的标准化富集分数为 1.58,p 值小于 0.01。
p53 通路的标准化富集分数为 1.09,报告的 p 值小于 0.5。
NF-κB 通路的标准化富集分数为 0.71,p 值大于 0.5。
按照这些结果,两条通路在整体转录组上的富集证据较弱。
这一组数据为作者选择 PPAR 作为后续候选通路提供了依据。不过,转录组来自完整肺组织,检测信号同时受细胞组成和各类细胞内部基因表达变化影响。它尚不能直接说明巨噬细胞内的 PPAR 活性如何变化。
对于线粒体自噬,Figure 7 也没有提供直接的体内通量测量。作者观察了动物组织炎症相关结局,并将这些结果与 Figure 5 的细胞实验联系起来。这意味着,论文已经在细胞和动物两个层面观察到了抗炎相关变化,但线粒体自噬在体内是否发挥必要的介导作用,还需进行更直接的验证。
六、如果要证明这条机制链,下一步究竟应该怎样做?
现在把论文已有证据集中到一起。
巨噬细胞处理后,Parkin 上升、LC3 上升、p62 下降,线粒体与溶酶体共定位增强。与此同时,JC-1 信号显示膜电位改善,IL-1β 下降,IL-10 上升。
这些结果已经足以形成一个明确的可检验假说:
可检验假说
BN\@NF 双刺激处理促进受损线粒体清除,而这一过程参与了巨噬细胞的抗炎反应。
”
接下来要设计的实验,应当逐步排除与这个假说竞争的其他解释。
第一轮:确认线粒体确实进入了降解过程
现有的 MitoTracker 与 LysoTracker 图像显示两个荧光信号重叠。下一项实验应该进一步追踪线粒体是否进入了酸性溶酶体环境。
可以在适合的细胞模型中使用 mt-Keima 等线粒体自噬报告系统。
这种报告系统利用荧光蛋白在不同酸度下的光谱特性,帮助研究者区分仍处于相对中性环境的线粒体与进入酸性降解区室的线粒体。
实验需要分别设置未处理组、炎症模型组、材料处理组和双刺激治疗组,并加入适当的阳性与阴性控制。
在 BN\@NF 体系中,还有一项额外检查:材料本身及超声、磁场处理是否影响荧光读数。材料可能散射或吸收光线,处理也可能改变溶酶体酸度。实验需要把这些干扰与线粒体进入酸性区室的变化区分开。
如果治疗组出现更多进入酸性区室的线粒体信号,再结合线粒体货物的降解证据,就能比普通共定位实验更有力地支持线粒体自噬过程增强。
若只看到溶酶体增多,却没有相应的线粒体转运与降解变化,就需要重新解释 Figure 5f 中增强的荧光重叠。
第二轮:阻断线粒体自噬,观察抗炎作用是否仍然发生
确认动态过程之后,可以开始测试机制的必要性。
一种方案是针对候选的 PINK1/Parkin 通路进行遗传干预。例如,在 RAW264.7 细胞中降低 Pink1 或 Prkn 的表达,并确认干预是否确实抑制了所研究的线粒体自噬过程。
随后仍使用论文原来的炎症刺激与材料处理体系。
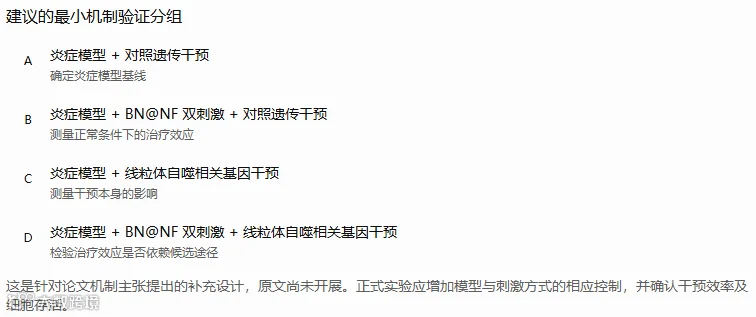
实验完成后,研究者同时检测线粒体自噬通量、膜电位、炎症因子与巨噬细胞表型。
假如 B 组的 IL-1β 下降,而 D 组的 IL-1β 下降幅度明显变小,同时确认 D 组的线粒体自噬过程确实受到抑制,那么候选途径的必要性就获得了支持。
但这个结果仍需检查一个问题:阻断 PINK1/Parkin 是否已经改变细胞整体的健康状态?
例如,细胞本身出现严重线粒体损伤或死亡,也可能改变炎症因子的测量值。因此,细胞活力、线粒体负荷和干预本身的炎症效应都需要一并检查。
如果 D 组仍然保持与 B 组相近的抗炎效果,研究者应先确认遗传干预是否充分。若干预有效,则说明该候选途径可能并非抗炎作用所必需,或者存在其他能够补偿它的线粒体质量控制途径。
第三轮:恢复候选机制,检验抗炎效应能否回来
在第二轮实验中,如果抑制 Prkn 后,BN\@NF 的抗炎效果减弱,研究者可以进一步开展救援实验。
一种思路是在适当条件下重新表达具有正常功能的 Parkin,并比较恢复前后的线粒体自噬通量与炎症表型。
如果重新表达后,线粒体自噬通量恢复,治疗相关的 IL-1β 下降和 IL-10 上升也重新出现,就能进一步减少基因干预脱靶或非特异性细胞损伤所带来的疑问。
还可以根据研究条件加入功能缺陷型蛋白对照,检查救援是否依赖 Parkin 的相关功能。
这里需要保留一个前提:
PINK1/Parkin 是线粒体自噬的一条重要途径,但细胞还存在其他线粒体自噬调节机制。
某条候选通路的必要性与线粒体自噬整体的必要性,是两个范围不同的问题。
因此,研究者应根据具体的阻断对象限定结论。如果实验只证明 Parkin 对治疗效果有贡献,就应报告 Parkin 依赖性;若要进一步主张线粒体自噬过程本身介导了抗炎作用,还需结合通量与其他选择性干预证据。
第四轮:将线粒体自噬与 NF-κB、PPAR 联系起来
完成前面三轮实验后,研究者才能更有针对性地研究下游炎症通路。
例如,在阻断线粒体自噬后,观察治疗引起的 NF-κB 活性变化是否减弱。这里应测量 p65 核转位、适当的磷酸化指标或转录活性,避免仅依赖 NF-κB 总蛋白水平。
PPARγ 也可以采用类似思路。检测其功能活性、靶基因表达,再进行选择性干预,才能判断它是否参与线粒体自噬与炎症表型之间的联系。
如果线粒体自噬受到阻断后,PPAR 相关反应消失,研究者可以进一步提出两者之间的调控关系。随后还需要检验调控方向,并排除两者共同受到上游治疗因素影响的可能。
这样,Figure 5 与 Figure 7 之间原本依靠多个相关实验连接起来的机制,就开始获得直接的因果检验证据。
七、将验证提炼成 Mechanism Research Decision Protocol
读到这里,你应该能够区分两件事:
一件是实验中观察到了什么,另一件是需要怎样的实验才能证明这些现象之间存在因果关系。
在本研究中,作者已经观察到了炎症表型变化、线粒体自噬相关蛋白变化、细胞器共定位增强及线粒体膜电位改善。
下一阶段最有价值的研究,应当集中在动态通量、机制阻断和救援验证。

我们最后可以停在这一张图上
Figure 5 的 Western blot 结果显示 Parkin 和 LC3 上升、p62 下降。旁边的共聚焦图像里,线粒体与溶酶体的荧光信号出现更多重叠。再往下看,JC-1 的红色信号增强,炎症因子 IL-1β 降低。
这些结果已经支持作者提出线粒体自噬相关的抗炎假说。
现在,假设你接手了这项研究。
你可以继续增加蛋白指标,也可以重复更多共定位图像,还可以扩大动物样本量。但如果研究目标是证明线粒体自噬介导抗炎作用,下一项实验应该直接改变这个候选机制,并观察炎症反应如何变化。例如,研究者在完成通量验证后抑制 Parkin 相关途径,再次给予 BN\@NF 双刺激治疗。
培养结束后,把两组细胞的炎症因子结果放在一起比较。一组保留正常的候选途径,另一组的途径已经受到抑制。如果两组的治疗反应开始分离,就获得了新的因果线索。若随后恢复通路功能,抗炎反应也随之恢复,证据链便向前推进了一步。
这时,再回来看论文最初的 Figure 5,Parkin、LC3 和 p62 的变化就有了更明确的机制解释。
Luo, X., Wu, Y., Zhang, S., Qu, H., Shao, S., Chen, J., & Wu, X. (2026). Magneto-sono-enhanced nanozyme catalysis drives ROS-mediated pathogen killing and mitophagy-linked inflammation control in bacterial pneumonia. Advanced Science, e77785.