


嘌呤霉素模拟氨酰tRNA的末端,进入核糖体A位点并接受新生肽链,与肽C端形成酰胺键,从而把肽与编码它的mRNA共价连接。靶标留下结合者;回收核酸、PCR扩增,再转录与翻译,进入下一轮。整个过程无需噬菌体感染和细菌扩增。[1,2]
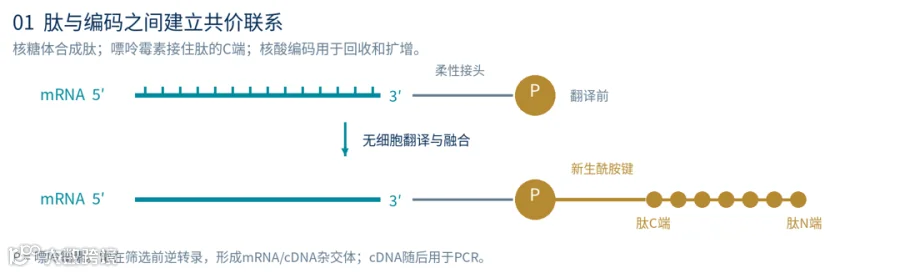
图1 mRNA与肽的共价联系。依据[1,2,7]原创绘制;封面为概念插画。筛选对象是展示态肽,PCR扩增的是其核酸编码。
路线 |
肽库如何形成 |
实验上的区别 |
线性肽 |
无细胞翻译后形成mRNA–肽融合体 |
先确认连接与翻译效率 |
化学环肽 |
翻译后以DBX/TBMB等连接Cys |
每轮重新环化;核酸和肽均须保持完整[3] |
RaPID |
FIT密码重编程与mRNA展示结合 |
可引入非天然单体;须验证装载、翻译和环化[5,6] |
真正的终点是脱离核酸后仍有结合和所需药理功能的合成肽。筛到高亲和力,并不自动意味着能够跨膜、口服或产生体内疗效。
01 先制备可筛选的展示肽库
以下以Villequey等的FGFR3c筛选为操作实例:PURE无细胞翻译、嘌呤霉素接头、翻译后化学环化和磁珠筛选。数值主要取自补充方法;换靶标前先验证构象、活性、固定效率和缓冲液兼容性。[3]
步骤 |
文献操作与关键参数 |
本步检查 |
1 建DNA库 |
随机区两侧设置T7启动子、翻译元件、尾部及接头识别区。原研究以引物1/4扩增7个循环,再等摩尔混合环肽子库。 |
核对读框、长度和起始库组成 |
2 转录 |
T7 RiboMAX Express转录;250 pmol mRNA配300 pmol嘌呤霉素寡核苷酸,T4 RNA ligase,室温1–2 h。 |
凝胶检查;原研究连接率70–90%,不是通用合格线 |
3 翻译 |
PURExpress ΔRF123:首轮25 μL,后续10 μL;含4%(v/v)RNasin Plus。37 ℃ 45 min,随后60 ℃ 15 min处理翻译体系。 |
用已知序列检查融合体;勿加回释放因子 |
4 逆转录 |
按补充方法顺序,热处理后用SuperScript III和引物6;50 ℃ 45 min。 |
去除热沉淀;记录核酸回收及可扩增性 |
5 环化 |
DBX 200 μM,或TBMB 200 μM作为原文比较条件;30 ℃,NH₄HCO₃ pH 8/10% DMSO。用G25换入PBS + 0.05% Tween-20,pH 7.4。 |
环化时长与缓冲液浓度见下方方法核对 |
表1 建库到展示。引物、随机模板及接头修饰详见[3]补充材料标注页13;展示步骤见标注页16–17(以PDF页脚为准)。
DBX为1,3-双(溴甲基)苯,TBMB为1,3,5-三(溴甲基)苯,分别可连接两个或三个Cys,形成单环或双环。换用骨架后须重新验证反应与展示兼容性。[3]
连接与库设计分别检查
连接成功不等于展示成功。RNA连接产物可用变性PAGE检查;再用适配的融合体分析,配合无嘌呤霉素/无翻译对照确认肽–核酸连接。仅有PCR阳性,不能证明存在完整展示肽。[1,7]
NNK不等于均匀的20种氨基酸。N代表A/C/G/T,K代表G/T;NNK含TAG,也会引入额外Cys。原研究环肽库虽有两个固定Cys,随机位点仍可提供第三个Cys以形成TBMB双环。不可把所有序列预先画成同一种环拓扑。[3]
方法核对与预实验边界
主文图1写60 mM NH₄HCO₃,补充展示方法写80 mM;模型肽反应时间也出现30 min与1 h两个版本,而随机库环化段未给时长。本稿按补充方法记录80 mM,但不将模型肽时长直接当作库的定案条件。[3]
项目建议:先以匹配的模型肽并行考察30/60 min,结合LC-MS转化、融合体完整性和核酸回收确定条件。连接酶用量、翻译mRNA投料及热沉淀离心参数也需在预实验中锁定;250 pmol是连接批量,不是25 μL翻译反应的默认投料。
02 完成一轮结合筛选与扩增
用同批捕获材料并行评估无靶标背景。生物素化靶标应去除游离生物素,并确认固定后仍保留活性。下表延续上一页FGFR3c实例,不套用噬菌体展示中的感染、酸洗脱或pfu滴定。[3]
步骤 |
具体操作 |
保留什么 |
1 反筛 |
库依次经过3次无蛋白磁珠吸附,每次20 μL链霉亲和素或NeutrAvidin磁珠。 |
进入正筛的上清;首份反筛磁珠 |
2 留输入样 |
反筛后取1 μL,用qPCR定量输入cDNA;记录余下的正筛实际体积。 |
输入样与稀释记录 |
3 正向结合 |
约20 pmol生物素化FGFR3c,固定于25 μL对应磁珠;与库孵育45 min。 |
靶标结合部分 |
4 洗涤 |
首轮用100 μL PBS + 0.05% Tween-20(pH 7.4)洗3次;第2/3轮每次体积增至200/300 μL。 |
洗后磁珠;按需留洗液 |
5 回收编码 |
以25 μL不含聚合酶和SYBR Green的qPCR混合液重悬;95 ℃ 5 min,回收cDNA。首份反筛磁珠同法处理。 |
正筛与背景输出cDNA |
6 定量 |
用引物1/4和KAPA HiFi体系定量并扩增。正筛扩增产物用于下一轮转录、展示和NGS。 |
未扩增输出、扩增产物及每轮记录 |
表2 一轮筛选,依据[3]补充材料标注页17。这里热回收的是核酸编码,不要求肽或靶标保持活性。
原文未写全反筛时长、正筛温度和总体积;因此无法由“20 pmol”推出结合浓度。这些条件须作为项目参数记录并预实验确定。若蛋白为50 kDa,则20 pmol = 1 μg;质量按实际分子量换算。
用回收率和背景比判断富集
回收率 = 输出cDNA总拷贝数 ÷ 实际投入cDNA总拷贝数
背景比 = 正筛回收率 ÷ 同条件无靶标对照回收率
计算示例:正筛及并行无靶标对照各投入10¹¹拷贝,分别回收10⁷和10⁵拷贝,则回收率为0.01%和0.0001%,背景比100。所有拷贝数均应校正取样比例、稀释倍数和总体积;示例数字不是实验结果。
qPCR建议使用同模板标准曲线,检查扩增效率和熔解曲线,并设无模板、无逆转录对照。不同投入量的正反筛样本,不能只比较Ct或直接相除输出量。原文串联反筛的第一份磁珠也不等同于“反筛后输入”的并行空珠对照。[3,7]
轮数由结果决定
该研究完成4轮后测序,不能据此规定所有项目都做4轮。结合跨轮富集、阴性背景、家族多样性和重复筛选决定是否继续;用预实验确定PCR最少有效循环数,避免过度扩增。若背景同时升高,应先查原因。[3,7]
03 RaPID如何构建非天然大环肽
RaPID(Random nonstandard Peptides Integrated Discovery)将FIT(flexible in vitro translation)与mRNA展示连接起来。Flexizyme是一类催化tRNA酰化的核酶,可装载适配的非天然底物;FIT通过重配翻译组分,让这些tRNA读取指定密码子。[5,6]
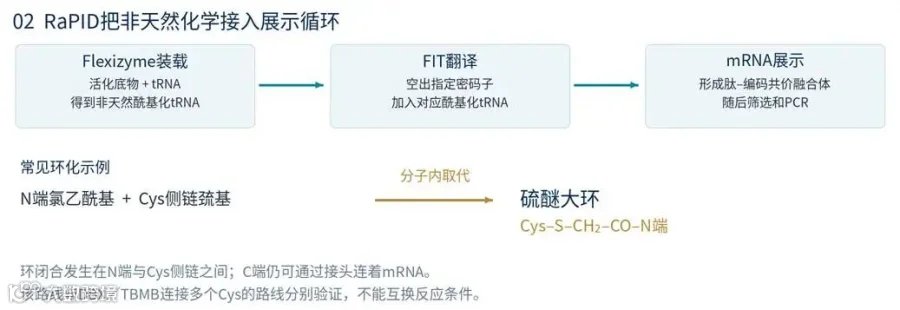
图2 RaPID工作原理与常见氯乙酰基–Cys硫醚环化示意。依据[5,6]原创绘制;图中表示连接关系,不表示特定命中肽结构。
环节 |
实际需要增加的操作 |
应确认什么 |
装载tRNA |
按底物选择活化酯与flexizyme;完成酰化、酸性条件回收及适配的低温保存。 |
先用microhelix/酸性PAGE等检查装载;条件依底物而变[5] |
重配翻译 |
移除与重编程位点竞争的天然底物或相关组分,补入所需酰基化tRNA。 |
用模型序列及质谱确认实际掺入;不能只凭DNA推定[5] |
形成大环 |
典型设计以N-氯乙酰化起始残基配合固定Cys,经硫醚键闭环。 |
环化效率、未成环物和额外Cys引起的异构体[6] |
逐轮再生 |
PCR后重新转录、连接、重编程翻译和环化,再做下一轮筛选。 |
每一轮维持同一密码子映射和化学骨架 |
常规PURExpress ΔRF123可用于展示,但不等于已经搭好的RaPID体系。加入一种游离D-氨基酸或N-甲基氨基酸,也不保证它会被核糖体有效掺入。[4,5]
终止密码子与解码表要对应
经典设计可用无终止密码子的模板;另一些方案保留终止密码子并控制释放因子。本例模板尾部含TAG,配套ΔRF123。随机区若出现TAG,要按实际体系评估停滞或截短,不能沿用噬菌体宿主的抑制读码规则;重编程库必须按项目映射表还原序列。[3,4]
技术已有功能性命中案例:Hayashi等通过RaPID获得Akt2抑制肽,多数结合阳性肽的抑制IC₅₀约100 nM;这些数值来自后续功能实验,并非由序列富集直接推算。[6]
04 命中必须经过脱离展示体系的验证

图3 从序列到命中的验证路线。结合[3,6–8]归纳;以下为面向多肽药物项目的操作建议。
环节 |
具体做法与判读 |
NGS解码 |
核对方向、读框、固定区和库长度;按实际密码子映射翻译。比较起始库、各轮正筛和背景样,按家族选代表,不只选末轮丰度最高的序列。 |
匹配结构复合成 |
确认L/D构型、非天然残基、起始基团、C端及尾部、Cys数目与环化剂。先合成匹配版本,再做截短与改造;用HPLC/LC-MS确认纯度和质量。 |
结合与选择性 |
用纯化合成肽作多浓度SPR/BLI或合适的溶液法;评估无关蛋白、近缘靶标和检测干扰。单一浓度的BLI估计值不能代替完整Kᴅ测定。 |
功能与用途 |
按项目目标测酶抑制、受体信号或竞争效应。细胞靶向用阴性/敲除细胞及竞争实验验证;内吞、胞质进入和组织分布分别评价。 |
末端要特别核对:本例PURE翻译肽以fMet起始,原研究合成初筛用Ac-Met模拟,二者并非化学上完全相同。若活性不一致,应复核起始基团及GSGSGS尾部,而非直接判定序列无效。[3]
常见现象与优先排查项
观察到的现象 |
优先排查 |
PCR很强,展示融合体很少 |
游离核酸、残余DNA或短截产物;查无逆转录、无翻译及无接头对照。 |
正筛和空珠一起富集 |
珠、标签、封闭组分或核酸介导的结合;用并行背景和游离肽复核。 |
少数序列迅速占满读数 |
初始丰度、PCR/翻译/融合偏倚或污染;检查跨轮变化及独立重复。 |
展示阳性,合成肽阴性 |
末端、尾部、环化拓扑、异构体或核酸参与结合;逐项还原结构。 |
LC-MS质量正确,活性不稳定 |
同质量环化异构体、未分离组分或聚集;完整质量不能单独证明环拓扑。 |
库规模也要实测:1 pmol约含6.02 × 10¹¹个分子,但独立有效序列数还受起始多样性、连接、翻译、融合及回收损失限制。文献中10¹²–10¹³级的库规模,不能由投入核酸的总量直接认定。[1,9]
交给药化团队的应包括序列与编码映射、完整化学结构、纯度与结构证据、独立结合和功能数据,以及可追溯的每轮条件。
参考文献:
[1] Roberts RW, Szostak JW. RNA-peptide fusions for the in vitro selection of peptides and proteins. Proc Natl Acad Sci U S A. 1997;94:12297–12302. DOI 10.1073/pnas.94.23.12297
查阅重点:共价融合机制与选择实验。
[2] Nemoto N, Miyamoto-Sato E, Husimi Y, et al. In vitro virus: Bonding of mRNA bearing puromycin at the 3′-terminal end to the C-terminal end of its encoded protein on the ribosome in vitro. FEBS Lett. 1997;414:405–408. DOI 10.1016/S0014-5793(97)01026-0
查阅重点:独立提出的体外基因型与表型连接方法。
[3] Villequey C, Zurmühl SS, Cramer CN, et al. An efficient mRNA display protocol yields potent bicyclic peptide inhibitors for FGFR3c: outperforming linear and monocyclic formats in affinity and stability. Chem Sci. 2024;15:6122–6129. DOI 10.1039/D3SC04763F
查阅重点:主文Fig.1–3;补充材料页脚13为寡核苷酸表,16–17为展示与筛选步骤,19为多浓度BLI。补充材料目录页码与实际页脚不完全一致。
[4] New England Biolabs. PURExpress ΔRF123 Kit (E6850) and Protein Synthesis Reaction protocol. 官方资料
查阅重点:释放因子配置与适用范围。厂商常规表达时间不替代[3]的展示实验时间。
[5] Goto Y, Katoh T, Suga H. Flexizymes for genetic code reprogramming. Nat Protoc. 2011;6:779–790. DOI 10.1038/nprot.2011.331
查阅重点:tRNA装载、底物适配与FIT体系的详细方法。
[6] Hayashi Y, Morimoto J, Suga H. In vitro selection of anti-Akt2 thioether-macrocyclic peptides leading to isoform-selective inhibitors. ACS Chem Biol. 2012;7:607–613. DOI 10.1021/cb200388k
查阅重点:RaPID硫醚大环肽及Akt2功能性命中。
[7] Cui Z, Ayva CE, Liew YJ, et al. mRNA Display Pipeline for Protein Biosensor Construction. ACS Sens. 2024;9:2846–2857. DOI 10.1021/acssensors.3c02471
查阅重点:展示各步质量检查与融合体分析;其蛋白支架条件未移植到本例肽库。
[8] Vamisetti GB, Saha A, Huang YJ, et al. Selective macrocyclic peptide modulators of Lys63-linked ubiquitin chains disrupt DNA damage repair. Nat Commun. 2022;13:6174. DOI 10.1038/s41467-022-33808-6
查阅重点:化学修饰、结合和细胞验证;荧光标签可能改变细胞进入表现。
[9] Guillen Schlippe YV, Hartman MCT, Josephson K, et al. In vitro selection of highly modified cyclic peptides that act as tight binding inhibitors. J Am Chem Soc. 2012;134:10469–10477. DOI 10.1021/ja301017y
查阅重点:高度修饰环肽库及独立功能验证。