视神经病变以视网膜神经节细胞(RGC)进行性死亡、视神经退变为核心特征,是不可逆失明的重要诱因,同时与阿尔茨海默病、多发性硬化等中枢神经退行性疾病高度关联,目前缺少有效的神经保护与再生临床方案。
腺相关病毒(AAV)基因治疗是RGC保护的重要策略,但CAG、CMV等广谱启动子会在视网膜多种细胞广泛表达,脱靶风险高、副作用不可控。如何实现视网膜神经节细胞(RGC)的精准靶向,成为突破临床应用的核心关键!
今天为大家解读一项重磅研究:Mouse γ-Synuclein Promoter-Mediated Gene Expression and Editing in Mammalian Retinal Ganglion Cells。研究团队筛选出小鼠γ-突触核蛋白(mSncg)特异性启动子,并以此构建RGC靶向AAV工具箱,已拓展至基因编辑、外源基因过表达和在体钙成像等应用,为视神经病变的精准基因治疗带来全新方案。

研究团队以AAV2为载体,通过体内外双重验证,对比不同启动子的RGC靶向能力,锁定最优靶向方案:AAV2+mSncg启动子+玻璃体腔注射。

01.体内小鼠实验:mSncg启动子特异性拉满
评估不同启动子RGC靶向能力,广谱启动子在神经节细胞层(GCL)及内核层(INL)均有表达;而mSncg启动子驱动的荧光信号,几乎完全局限于神经节细胞层,精准锁定目标RGC细胞。
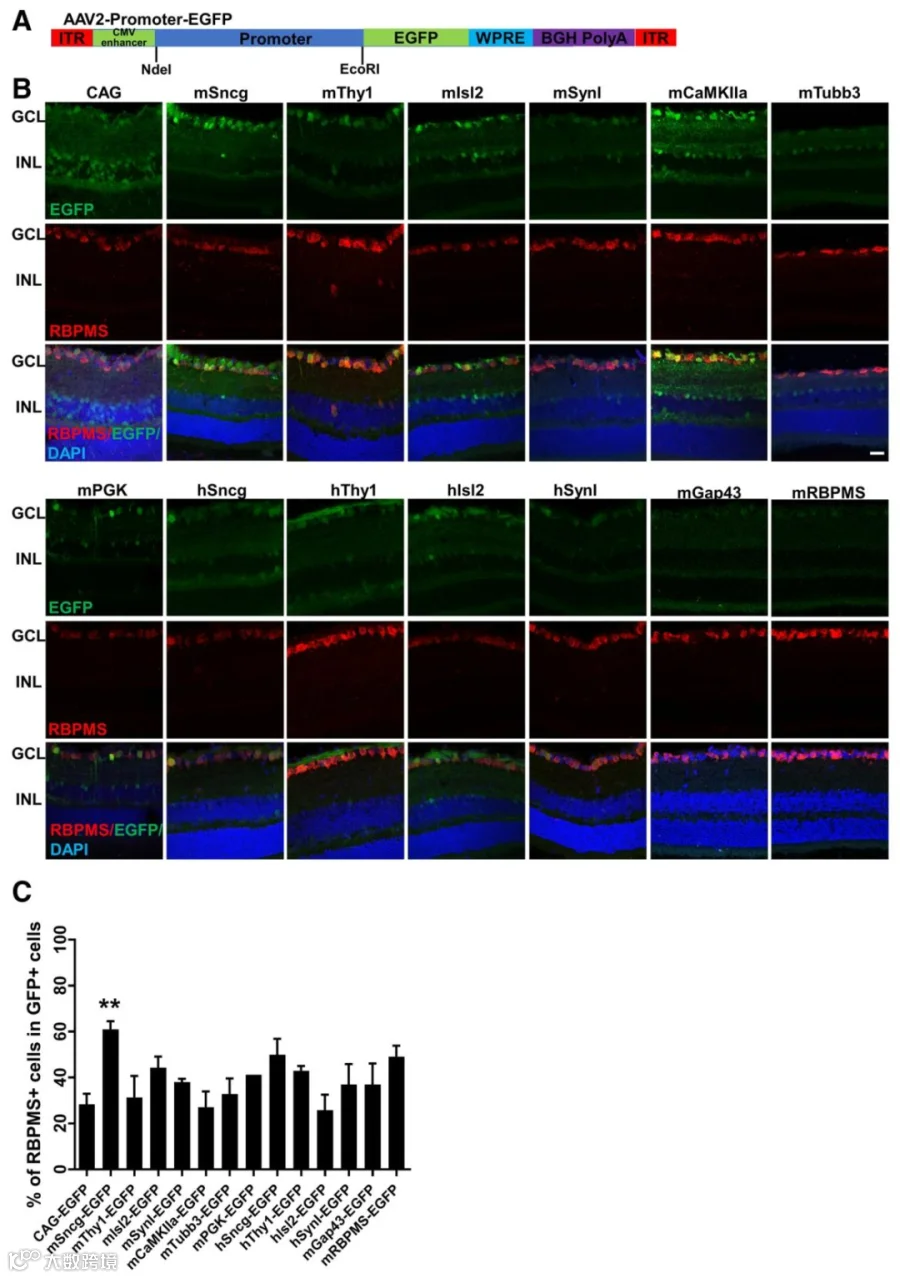
图1.不同启动子调控EGFP在小鼠视网膜中的层特异性表达
双重标记实验佐证靶向效果:
-免疫组化检测:78%的RGC可被高效转导,85%的表达细胞为特异性RGC(图2A、B)。
-上丘(SC)DiI逆行标记:75%的投射RGC被成功靶向表达EGFP(图2C、D)。

图2.利用RBPMS免疫标记与DiI逆行追踪,共识别小鼠视网膜中AAVmSncg EGFP阳性RGC,共同标记效率达到80%以上。AAV-mSncg-EGFP病毒的递送量为3E+9vg/eye。
02.体外人源细胞验证:完胜人源同源启动子
研究在hPSC分化来源RGC(已整合Brn3b:tdTomato)、人原代RGC及人干细胞分化RGC中对比验证,小鼠mSncg启动子的转导效率显著优于hSncg(图3A-C),完美解决人源启动子表达偏弱的难题。
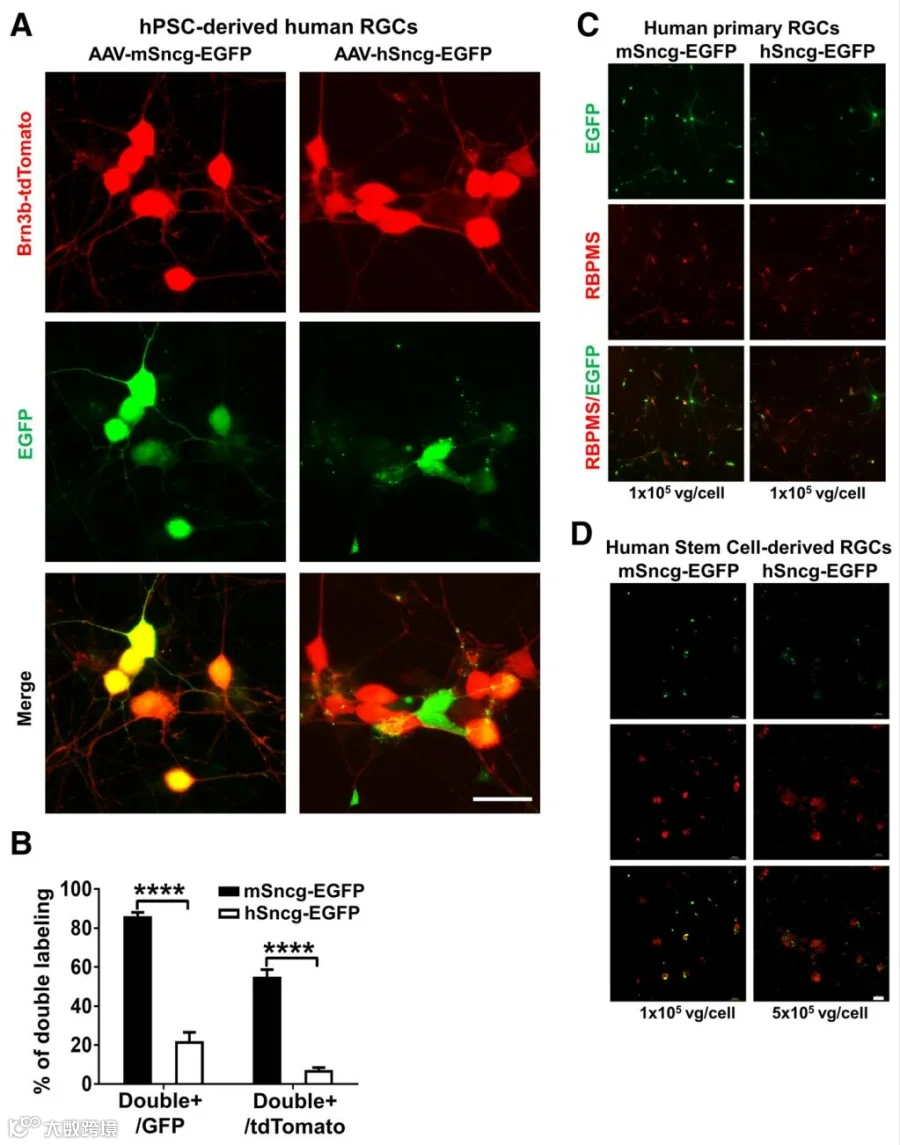
图3.验证AAV-mSncg-EGFP在不同来源人RGC中的转导效率
基因治疗的核心诉求之一,就是长效稳定表达。研究通过活体激光检眼镜(SLO)长期动态监测,对比mSncg与传统CAG启动子的表达模式:
-mSncg组:注射后4周表达达到峰值,短暂下调后自3个月持续回升,稳定高效表达直至12个月(图4A-C)。
-CAG广谱组:表达强度整体偏弱。
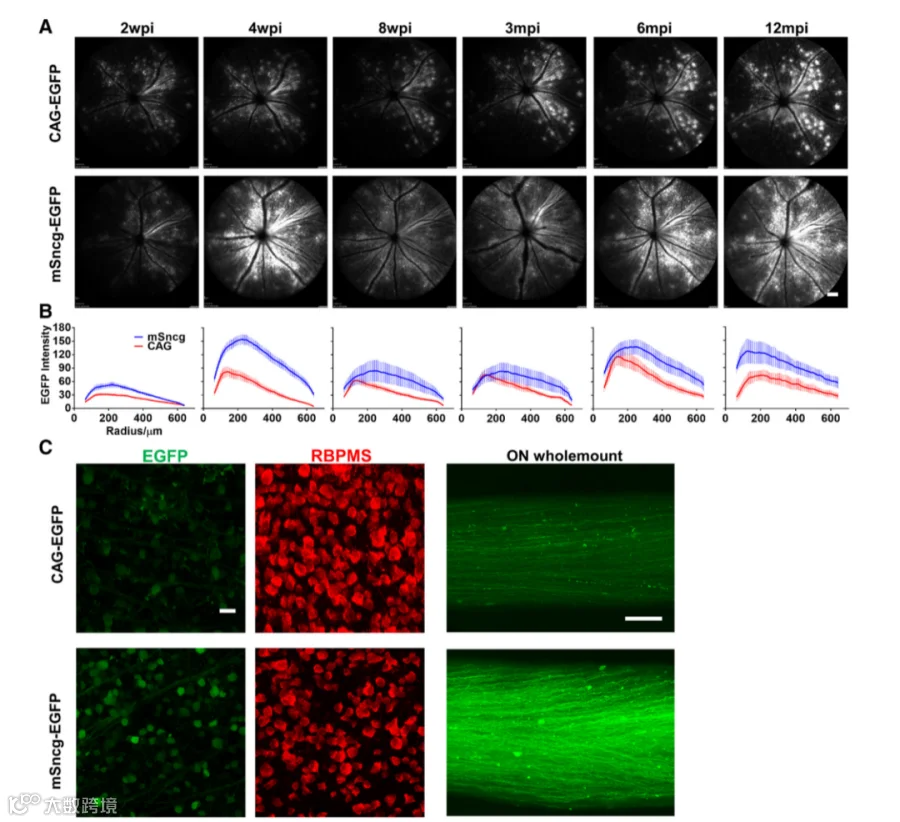
图4.小鼠RGC中mScg或CAG启动子驱动的长期EGFP表达
AAV病毒载体包装容量有限(约4.7kb),缩短启动子可以容纳更大外源基因。将1.45 kb全长mSncg从5’端截短获得1.03 kb、0.66 kb、0.27 kb三种变体(图5A):
①所有截短变体均保留接近全长的RGC启动活性(图5B–D)
②截短程度越高,内核层非特异性荧光越多,RGC靶向特异性逐步下降(图5E),证明启动子上游序列是维持细胞特异性的关键。
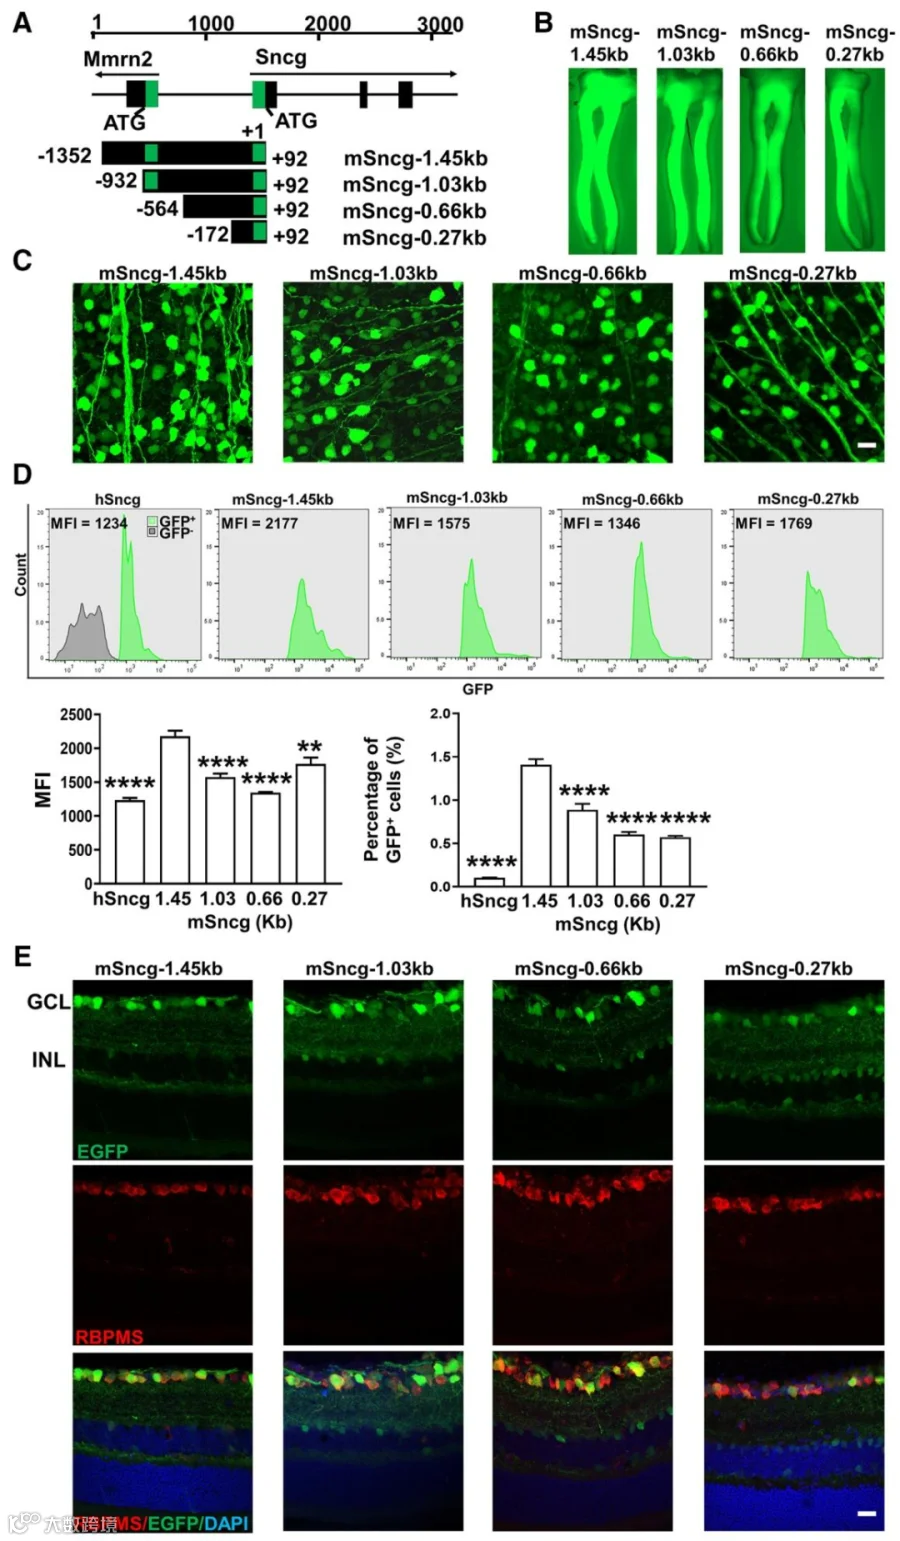
图5.小鼠RGC中不同截断型mScg启动子的特异性和效力
01.双靶点精准编辑,阻断RGC双重退变通路
视神经损伤退变分为两大独立通路:Ddit3基因:介导内质网应激,诱发RGC胞体凋亡;Sarm1基因:主导视神经轴突退变断裂。二者作用相互独,双基因同步靶向是最优治疗思路。
使用0.27 kb 截短 mSncg 启动子包装 SpCas9,全长mSncg驱动Cre;联合 AAVU6CHOP/SARM1 gRNAs,分别在野生型小鼠和LSLFlagSpCas9工具小鼠开展验证:
①可在 RGC 成功表达 Cas9,有效下调Ddit3(CHOP)、Sarm1(图6A、B)。
②原位杂交 + 免疫染色证实内源性 Ddit3、Sarm1 被敲低,损伤诱导基因上调后,敲低效果更加显著(图6C、D)。
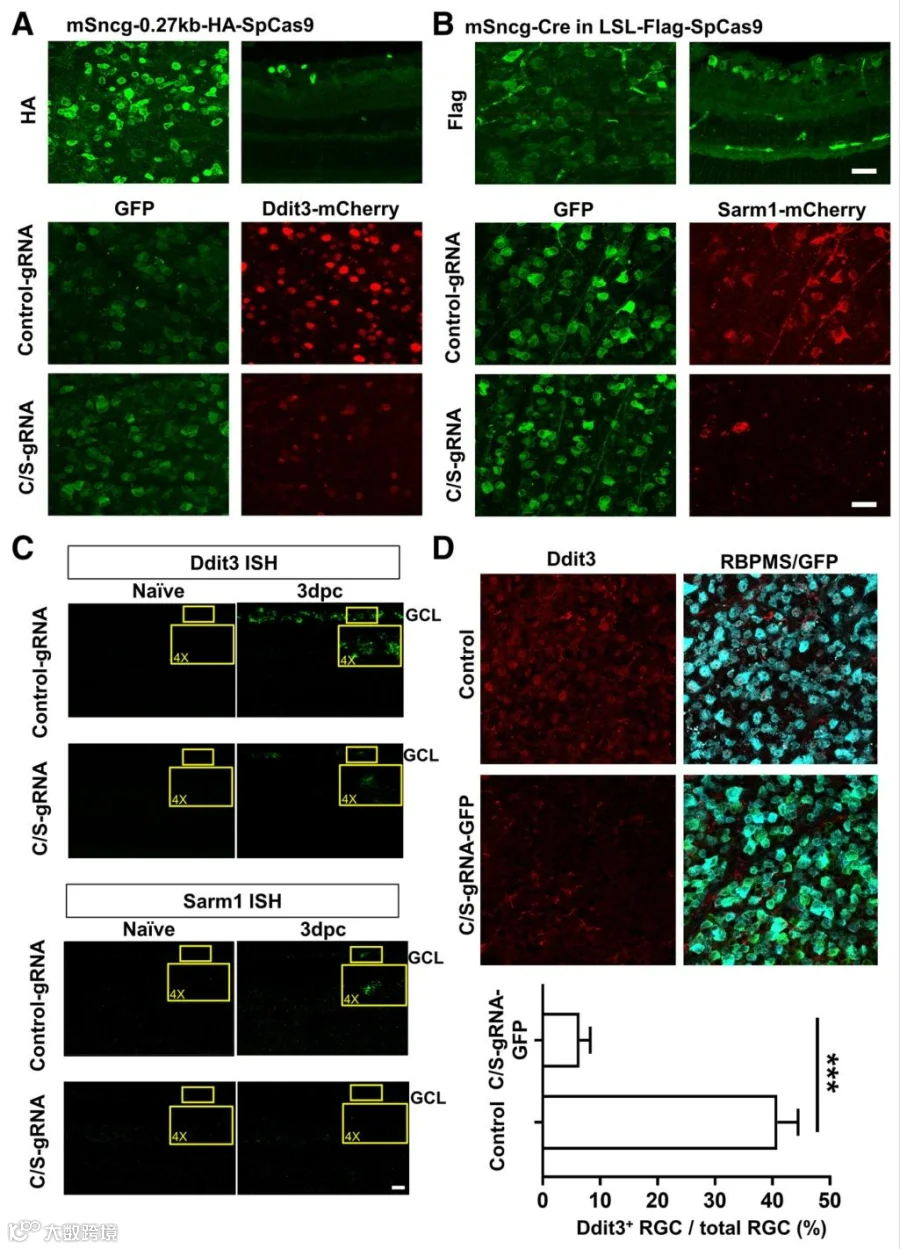
图6.AAV-mSncg-CRISPR/Cas9介导小鼠RGC中Ddit3与Sarm1基因敲低

02.模型验证:真正实现视神经损伤的神经保护
构建小鼠急性视神经夹伤模型,模拟临床急性视神经损伤、退行性病变场景,通过活体OCT成像+组织学检测神经节细胞复合体(GCC)厚度,双重验证治疗效果。
- 空白对照组:损伤2周后,神经节细胞复合体(GCC)厚度下降20%,RGC大量死亡、视神经轴突严重退变(图7A、B)。
- 双基因敲低治疗组:GCC厚度显著保留,RGC存活数量、视神经轴突存活率大幅提升(图7CF)
- 野生型直接递送AAVmSncgCas9的保护效果优LSLCas9工具小鼠的全长mSncg递送Cre的介导体系。
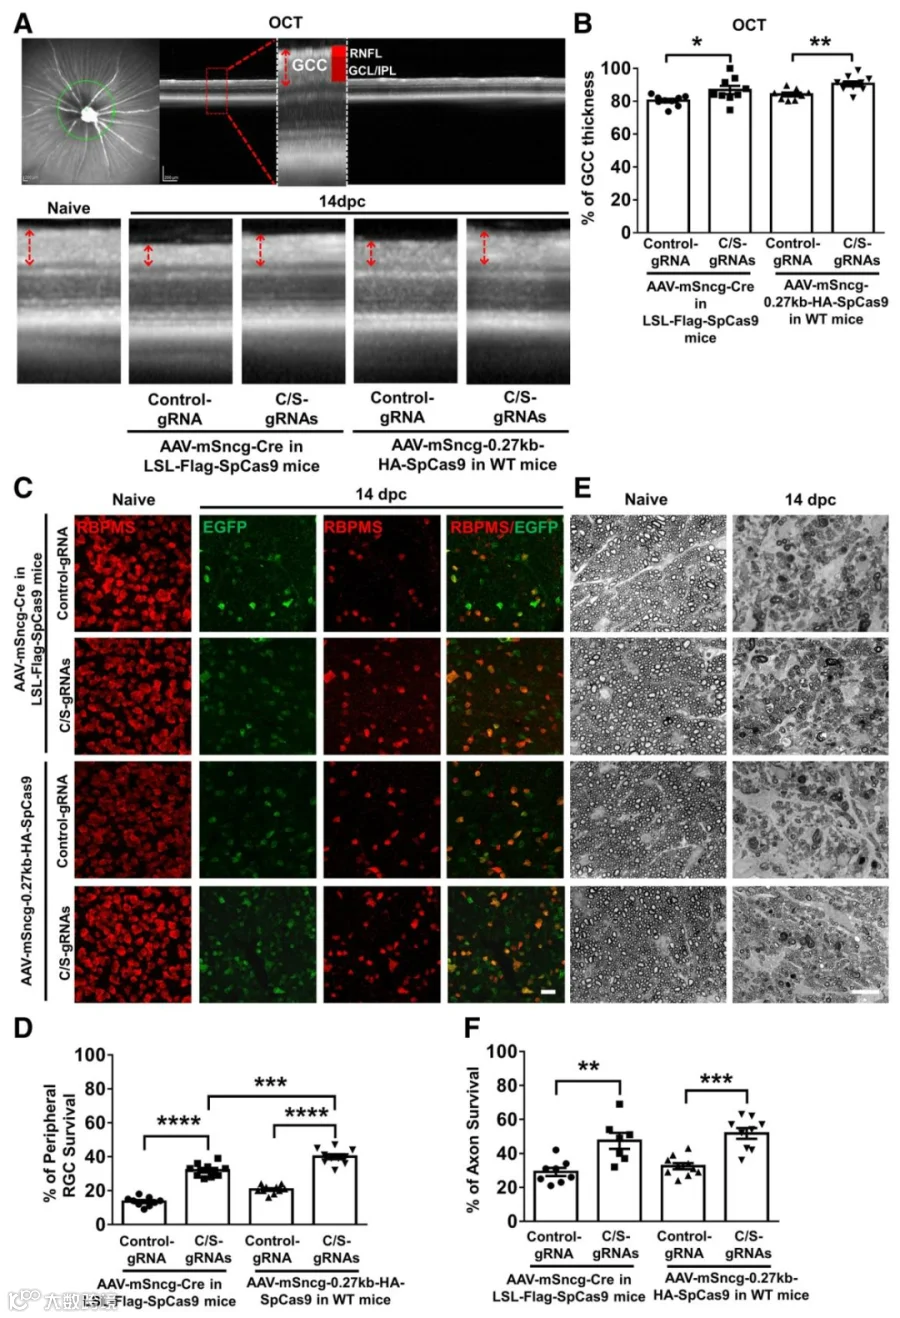
图7. AAV-mSncg-CRISPR/Cas9靶向敲除 Ddit3/Sarm1 改善视神经压碎损伤后RGC 胞体及轴突存活
案例1:活体单细胞动态钙成像,捕捉疾病早期功能损伤(PNAS,2022,Liang Li,Yang Hu)

该研究利用AAV2mSncgjGCaMP7s实现RGC特异性钙探针精准表达,结合cSLO成像平台,可在活体小鼠中同步记录数千个RGC的光诱发钙信号,实现数周时长的单细胞纵向追踪。传统研究仅能观察细胞结构与存活数量,而该技术可精准捕捉视神经挤压、青光眼模型中RGC死亡前的功能表型转换,填补了疾病早期功能学评价的技术空白,为视神经保护药物、基因治疗的效果评估提供了全新在体检测手段。
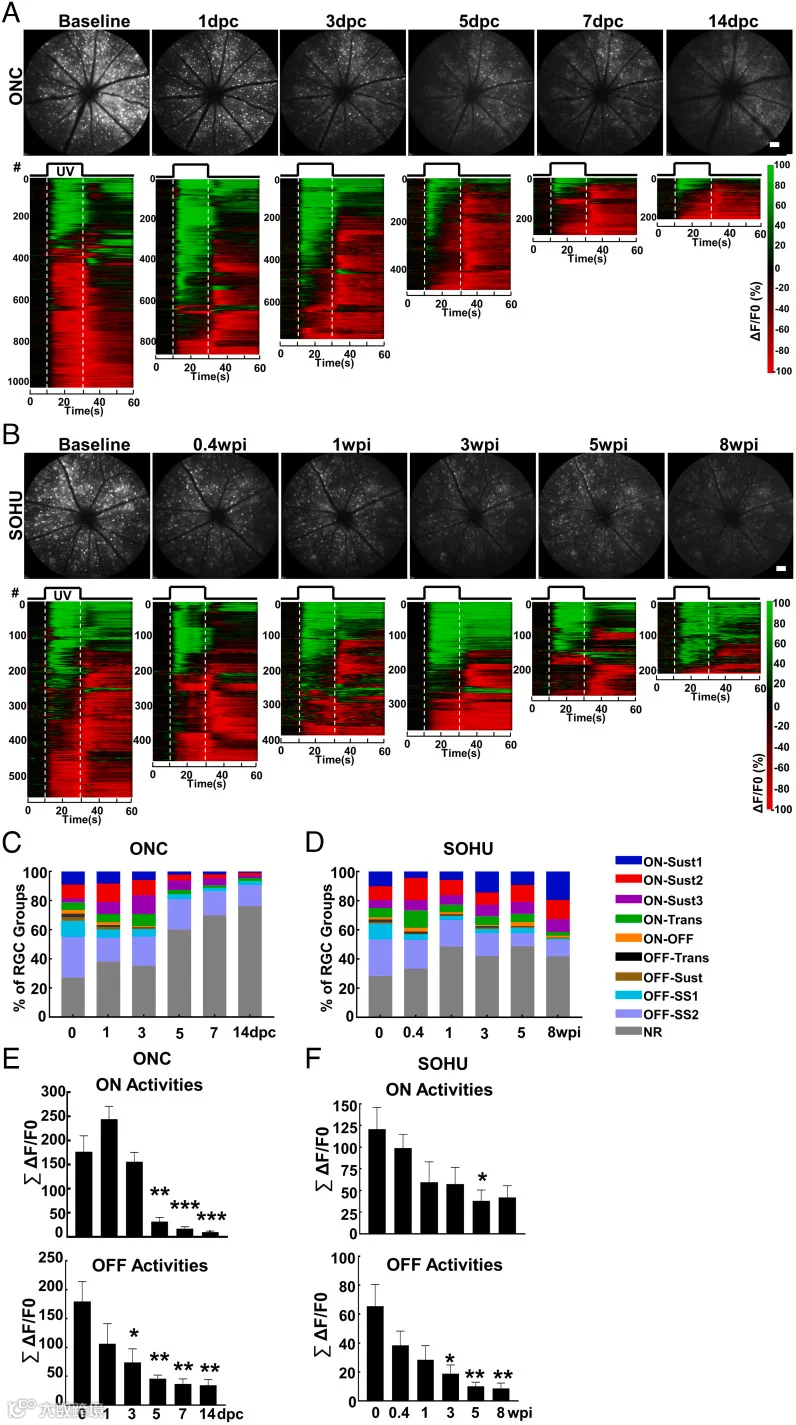
图8.纵向Ca²⁺成像群体分析,直观展示ONC、SOHU青光眼模型中RGC活性的动态变化特征
案例2:靶向NMNAT2基因治疗,成功挽救视觉功能(Molecular Therapy. 2022,Fang Fang,Yang Hu)
研究证实青光眼病理状态下,RGC内源保护性基因NMNAT2显著下调。团队利用AAV2-mSncg-NMNAT2 Δex6玻璃体腔注射方案,在RGC中特异性过表达长半衰期NMNAT2突变体。该靶向治疗可有效提升RGC胞内NAD⁺水平,显著抑制青光眼、视神经损伤诱导的神经退行性病变,成功挽救RGC与视神经轴突损伤,最终保护动物视觉功能。

图9. NMNAT2介导青光眼神经保护的核心机制原理图
案例3:AAV-mSncg-CaMK IIα-T286D,基因治疗挽救神经损伤导致的RGC退行性凋亡 (Cell, 2021, Xinzheng Guo, Bo Chen)

视网膜神经节细胞(RGC)发生胞体兴奋性损伤或视神经轴突损伤后。CaMKIIα‑ T286 位点磷酸化水平降低,致使 CaMKII‑CREB 信号通路受到抑制。过表达组成型激活突变体 CaMKIIα‑T286D 可逆转病理损伤,保护 RGC 胞体与长距离轴突投射,维持视网膜‑视皮层完整视觉通路功能。借助 AAV2‑mSncg 启动子介导 CaMKIIα‑T286D 过表达,可实现治疗基因的 RGC 特异性递送,在保留 CaMKII 通路神经保护作用的同时,规避非靶细胞异位表达带来的潜在安全风险。
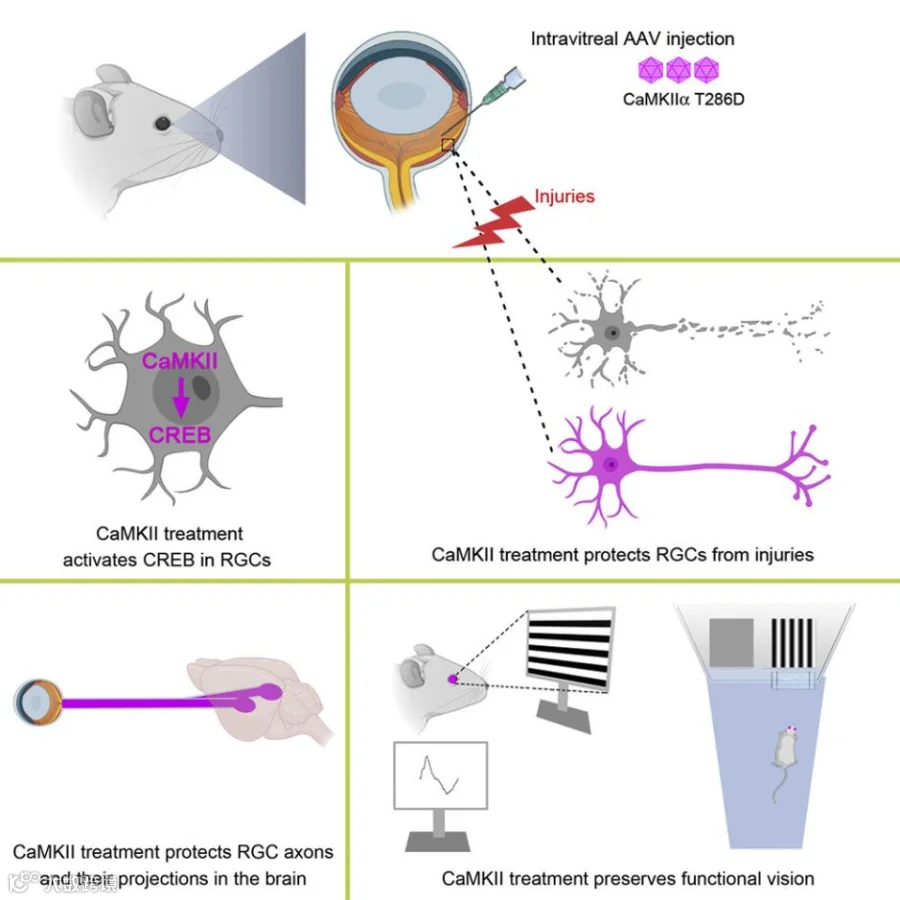
图10. CaMKII 对视网膜神经节细胞的保护作用及其视力保存效应
案例4:AAV-mSncg-Anxa2,基因治疗促进视神经再生和青光眼的治疗(Neuron,2022, Liang Li, Yang Hu)

研究借助单细胞转录组技术区分了再生型 RGC 与存活但无再生能力的 RGC,筛选出 Anxa2、ILK、Mpp1 等一批青光眼神经修复候选基因。这类靶点可通过AAV2‑mSncg 启动子实现 RGC 特异性递送,在青光眼模型中保护 RGC 胞体、轴突并维持视功能,为 RGC 基因治疗提供新的候选治疗基因库。

图11.Anxa2 可显著促进ONC视神经再生
案例5. AAV-CS265(截短型mSncg)-Gsn,基因治疗促进长距离视神经再生和青光眼的治疗(Science translational medicine,2026, Liang Li, Yang Hu)
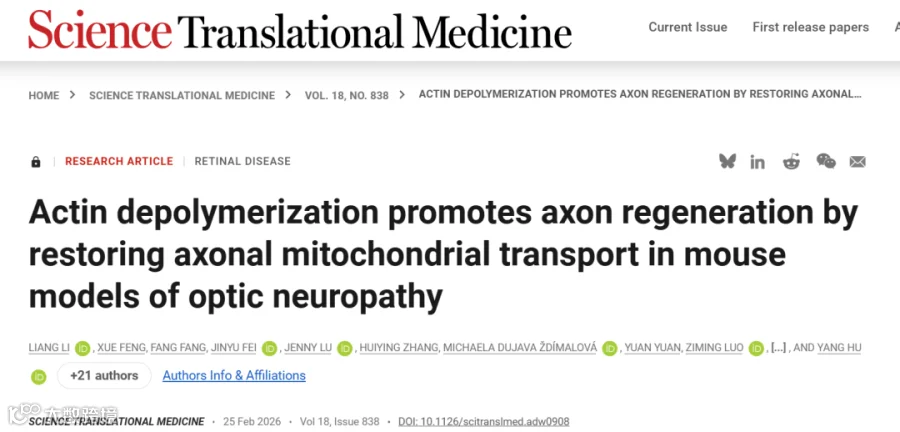
Gsn 是凝溶胶蛋白,可剪切聚合态肌动蛋白 F‑actin,介导肌动蛋白解聚,是再生型 RGC 中显著上调的关键再生基因。研究利用 AAV2‑mSncg 启动子实现 Gsn在 RGC 中的特异性过表达,可降低轴突内 F‑actin 水平,恢复线粒体双向轴突转运,进而促进 RGC 轴突再生,同时保护 RGC 胞体,在视神经挤压、高眼压青光眼模型中实现神经保护与轴突修复。

图12.RGC特异性的Gsn过表达改善了小鼠SOHU青光眼模型中线粒体运输缺陷、视觉功能及RGCs和ON的存活率。
布林凯斯可提供mSncg启动子各类定制服务,请联系小布:18971216876(微信同号)或者咨询所在区域的销售经理获取更多信息。
参考文献
活动
EVENTS
集锦
关于布林凯斯