



来源:俞十四搬运铺
“早 C 晚 A"已成为当代护肤的入门公式。视黄醇因能促进胶原合成、加速表皮更新,被奉为抗衰“黄金标准”。然而,许多人在追求高浓度时遭遇了刺痛、脱皮甚至炎症爆发。视黄醇似乎在越过某个临界点后,从“修护使者”变成了“应激源”。
这种低浓度促增殖、高浓度致损伤的“双相效应”虽早被临床观察,但其系统性分子机制长期模糊。近期发表于《Synthetic and Systems Biotechnology》的一项研究,借助多组学整合与基因组代谢网络模型,绘制了视黄醇浓度依赖性调控的全景分子网络。

皮肤老化与视黄醇悖论
皮肤老化的核心战场在真皮层。真皮成纤维细胞通过调控胶原、弹性蛋白和细胞外基质(ECM)的动态平衡,维持皮肤的机械强度与弹性。老化导致成纤维细胞增殖能力和生物合成活性显著下降,YAP/TAZ 通路受抑,CCN1/TGF-β/AP-1 信号轴异常激活,共同加速 ECM 降解。近年来,氧化应激和脂质代谢紊乱被认为是皮肤细胞功能障碍的根本驱动因素,其中铁死亡(一种由脂质过氧化驱动的铁依赖性程序性细胞死亡)正日益受到关注。
视黄醇作为维生素 A 的关键活性形式,在低浓度下可刺激成纤维细胞增殖,上调胶原合成并抑制基质金属蛋白酶(MMPs)和 CCN1,促进 ECM 修复;一旦超过临界浓度,则从修护因子转变为应激源,诱导强烈炎症、细胞周期阻滞乃至凋亡。这种从促增殖到促凋亡的剧烈转换,正是视黄醇双相效应的典型表现。遗憾的是,既往研究多聚焦于少数孤立通路,无法从系统层面解释这一浓度依赖性。
系统生物学的整合策略
为突破这一瓶颈,研究团队采用整合系统生物学策略,对人成纤维细胞(HFFs)进行三层组学分析:转录组(RNA 测序)、蛋白质组(DIA 采集)和代谢组(LC-MS 非靶向)。更关键的是,他们将多维数据整合进基于 Human1 的基因组代谢网络模型(GEMs),通过 ftINIT 算法构建情境特异性模型,实现从分子改变到细胞表型的预测性模拟。实验设置未处理对照(WT)、低浓度(5 μg/mL,A5)和高浓度(30 μg/mL,A30)三组,处理 24 小时。
表型确认:双相效应的定量证据
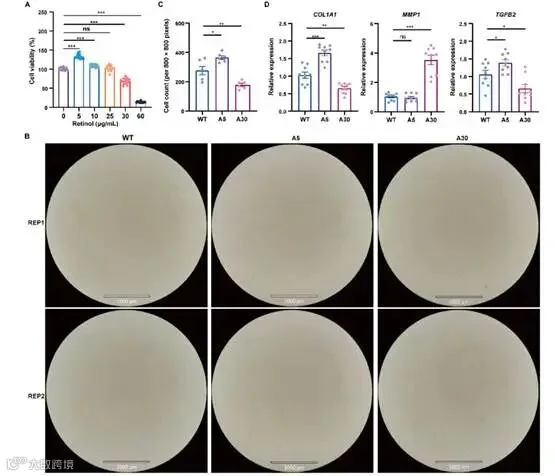
CCK-8 实验首先确认了视黄醇对 HFF 增殖的显著双相调控:低浓度(≤10 μg/mL)显著促进增殖,5 μg/mL 达峰值(P<0.001);高浓度(≥30 μg/mL)强烈抑制增殖(P<0.001)。形态学分析显示 A5 组贴壁细胞密度显著增加,A30 组细胞绝对数量急剧下降,提示大量细胞脱落和死亡。值得注意的是,存活细胞的形态在各组间无显著差异,这反映了“幸存者偏差”,遭受严重毒性的细胞变圆脱落,而快速丧失黏附正是铁死亡等程序性死亡的公认形态学标志。
ECM 基因 qPCR 同样呈现浓度依赖性。A5 组上调胶原合成基因 COL1A1 和上游信号 TGFB2;A30 组下调 COL1A1/TGFB2,同时大幅上调胶原降解基因 MMP1。基于这些表型和分子证据,5 和 30 μg/mL 被选定为后续多组学分析的代表性低、高浓度。
转录组:浓度依赖性基因重编程
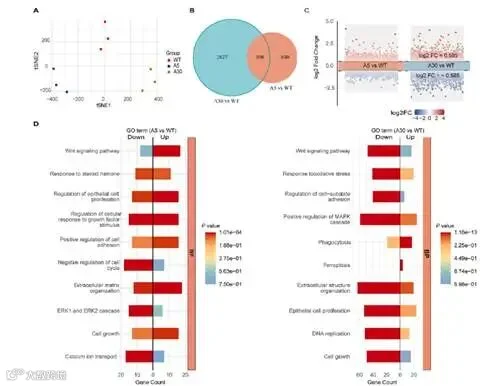
t-SNE 聚类显示三组样本清晰分离且组内重复性良好。差异表达分析揭示,A5 组 1348 个差异基因(DEGs),A30 组 3135 个 DEGs,两组共有 508 个,反映视黄醇的加入对基因表达具有广泛影响。GO 富集显示,两组均富集细胞周期、细胞黏附和 ECM 相关生物学过程,但方向截然不同。A5 组 Wnt 信号、细胞生长和 ECM 通路上调,钙转运、TGF-β 和 ERK1/2 级联受抑;A30 组则相反,生长通路广泛抑制,吞噬和铁死亡相关基因强烈上调。
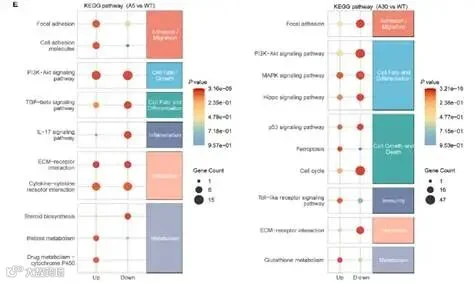
KEGG 分析进一步勾勒核心网络。两组均富集 ABC 转运体和视黄醇代谢通路,RARB、CYP26A1、CRABP2 等关键基因的改变与细胞内视黄酸信号活性的经典指标一致。A5 组激活黏着斑、细胞黏附分子和 CYP450 药物代谢,抑制类固醇合成和 IL-17 炎症通路;A30 组抑制黏着斑和 Hippo 信号,上调铁死亡、坏死性凋亡、吞噬体和谷胱甘肽代谢,细胞周期、ECM-受体相互作用、PI3K-Akt 等生长通路仅在下调基因中富集。
蛋白质组:功能网络的重塑
DIA 蛋白质组在蛋白层面印证了浓度依赖性响应,t-SNE 显示三组清晰分离,A30 组诱导的蛋白丰度变化比 A5 组更为广泛。
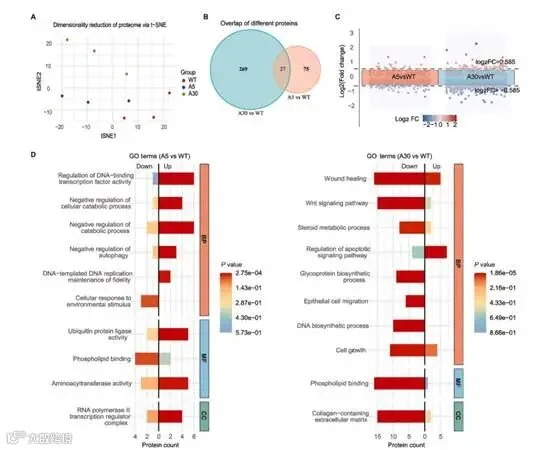
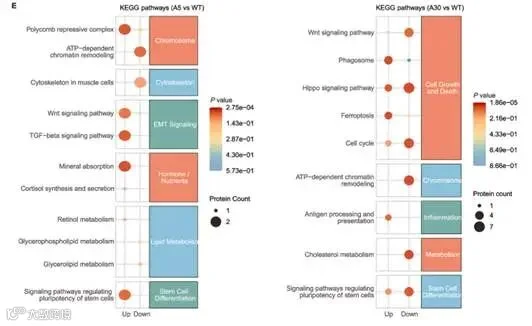
A5 组呈现促增殖状态。DNA 合成、RNA 聚合等合成代谢激活,Wnt 信号和干细胞多能性通路激活;SMAD3、DAAM2 等核心节点在两组均改变。此外,PRC 上调、ATP 依赖染色质重塑下调,类似于干/祖细胞的表观遗传特征,可能建立“祖细胞样”状态,并伴随脂质生物合成减少和矿物质吸收增强的代谢重编程。
A30 组转向应激损伤状态。铁死亡、吞噬体、Hippo 信号和抗原呈递通路上调,细胞周期、干细胞多能性、Wnt、染色质重塑和胆固醇代谢下调。炎症蛋白 C1S 和应激调节因子 RCAN1 显著上调。尤为引人注目的是,参与高尔基体 - 内体运输和自噬的 GTP 酶 RAB33A 在 A5 和 A30 组间呈现完全相反的表达趋势,凸显膜动力学和应激应答的双相重编程。
代谢组:最终功能表型的显现
OPLS-DA 显示三组代谢谱清晰分离,共 531 个显著差异代谢物,A30 组变化最剧烈。
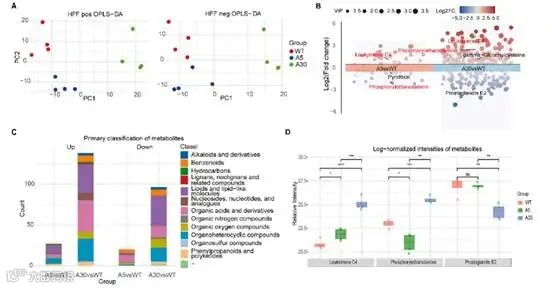
A5 组呈现促增殖特征。脂质及类脂物丰度显著增加,与细胞增殖过程中对磷脂等膜成分的高需求一致;有机酸及其衍生物普遍减少,提示细胞处于高能效、代谢副产物最少积累的健康状态;磷酸乙醇胺显著下降,可能源于其被快速消耗用于膜磷脂合成;维生素 B6、泛酸/辅酶 A 合成通路增强,关键前体浓度下降,提示辅酶合成消耗增加以响应增强的生物合成需求。
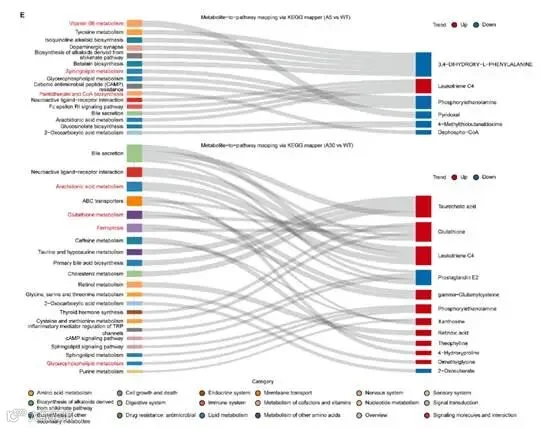
A30 组则伴随广泛代谢失调。脂质代谢增减各半,稳态受扰;磷酸乙醇胺显著积累(膜脂降解而非合成);花生四烯酸代谢激活导致炎症介质白三烯 C4 显著积累;谷胱甘肽代谢和胆汁分泌通路激活(氧化应激防御)。这些失调通路与铁死亡强关联,为蛋白质组分析中观察到的程序性细胞死亡提供了支持性的代谢证据。
多组学整合:铁死亡核心通路的锁定
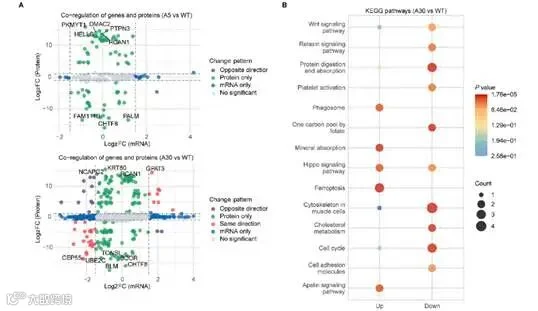
转录组 - 蛋白质组九象限图显示,在两种处理浓度下大量基因 - 蛋白对偏离对角线,表明广泛的转录后调控是视黄醇作用的关键特征。A5 组中协调变化的基因 - 蛋白对较少,未观察到统计学显著的通路富集,DHRS3、GPRC5A、ID1、HELLS、SMAD3 等关键分子的功能注释指向视黄酸信号、DNA 复制和分化抑制。A30 组则在多个核心通路中呈现显著的基因 - 蛋白协调变化:下调富集于细胞周期、胆固醇代谢和 Hippo 信号;上调富集于铁死亡(P=6.60×10⁻⁶)和吞噬体(P=2.05×10⁻³)。
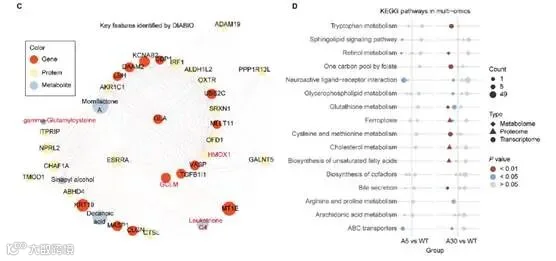
DIABLO 多组学整合鉴定出区分表型的核心特征网络:抗氧化蛋白 HMOX1、GCLM,促炎代谢物白三烯 C4,以及 GSH 前体γ-谷氨酰半胱氨酸——氧化应激的核心地位凸显。跨组学通路富集显示,A5 vs WT 仅表现出轻微细胞扰动,视黄醇代谢和鞘脂信号主要在代谢组层面富集;A30 vs WT 则在多个组学层面呈现强烈富集,铁死亡在转录、蛋白、代谢三层均显著富集,谷胱甘肽代谢三层富集且在转录和代谢层达显著,半胱氨酸/蛋氨酸代谢、叶酸一碳单位、色氨酸代谢也在三层富集。
GEMs:代谢流重塑的模型验证
为超越孤立组学层面、全面理解细胞功能,研究者将转录组数据与人类基因组规模代谢模型 Human1 整合,通过 ftINIT 算法构建情境特异性 GEMs,并利用 Kiwi 进行报告代谢物分析、RIPTiDe 进行通量采样。子系统和报告代谢物比较揭示了截然不同的浓度依赖性代谢模式。
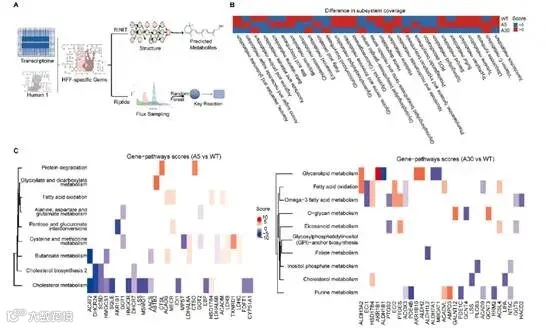
A5 组中维生素 C 代谢激活(抗氧化增强),胆固醇生物合成作为代谢网络中心模块被一致抑制(三条通路 + 前体均减少),体现节约 NADPH 的策略。
A30 组中子系统活性全局降低(生物蝶呤、泛醌合成、氨基酸代谢),脂肪酸氧化、白三烯代谢和胆固醇合成成为中心节点;类花生酸代谢特异性激活,凸显炎症应激对高浓度视黄醇诱导代谢失调的贡献。
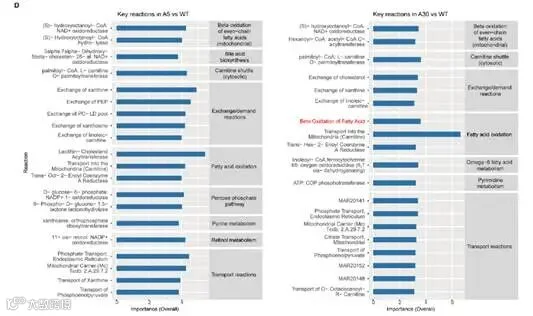
随机森林分析显示,A5 组关键反应为视黄醇代谢(11-cis-视黄醇:NAD+ 氧化还原酶)和线粒体β氧化,提示低浓度下细胞能正常应对应激维持稳态;A30 组高贡献反应转为脂肪酸β氧化和脂质过氧化相关反应,且脂肪酸β氧化从线粒体转向过氧化物酶体。这可能是对氧化应激的适应性反应,与氧化应激模型中的报道一致。
机制总结:两条分岔的细胞命运
综合多组学与 GEMs 分析,研究者提出视黄醇双相效应由代谢转变驱动:低浓度下优化代谢网络支持信号转导并促进增殖,高浓度下引发代谢失调和氧化应激并可能导致铁死亡。
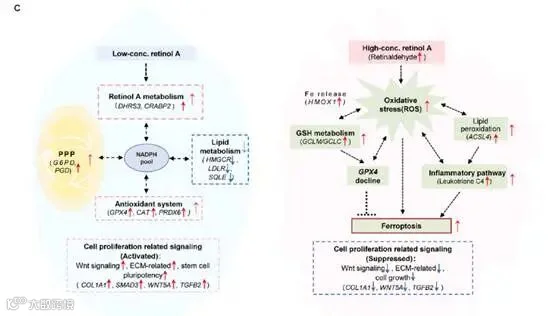
低浓度“代谢优化状态”中,由 DHRS3、CRABP2 驱动的视黄醇特异性信号稳健激活,诱导以 NADPH 为中心的双重代谢调整:一方面,细胞通过上调磷酸戊糖途径(PPP)的限速酶 G6PD 和 PGD 增强 NADPH 再生,竞争性酶 AKR1B1 的下调进一步支持这一方向;另一方面,为防止这一关键资源耗竭,细胞主动抑制主要的 NADPH 消耗通路——多组学谱和靶向 qPCR 均证实 HMGCR、LDLR 等胆固醇生物合成核心枢纽的转录被显著抑制。这种“开源节流”的双重代谢机制维持了充足的 NADPH 池,进而同时增强抗氧化系统和视黄酸代谢,最终营造有利于细胞增殖的氧化还原微环境。
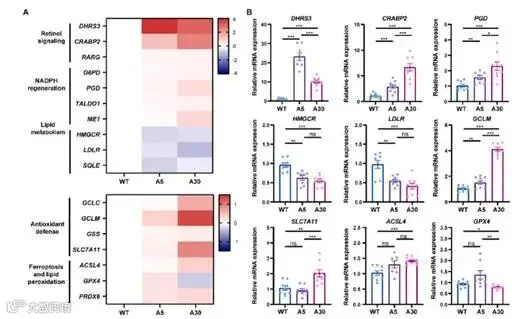
高浓度“细胞毒性级联”中,表型表现为多系统破坏,严重氧化应激与白三烯 C4 介导的促炎脂质风暴构成核心损伤特征。细胞启动了代偿性自救程序——GCLM 和胱氨酸/谷氨酸反向转运体 SLC7A11 高度显著地上调以促进 GSH 合成。然而,ACSL4 的同时上调可能驱动毒性脂质过氧化物的积累,加之 NADPH 的严重下降,严重损害 GSH 再生,最终核心 SLC7A11/GSH/GPX4 防御轴崩溃,细胞对铁死亡敏感。研究还发现高浓度下调表观遗传调控因子 KMT5A(铁死亡保护基因),提示炎症-KMT5A- 铁死亡的有害反馈环;Hippo 信号抑制意味着 YAP/TAZ 下调与代谢紊乱协同抑制增殖。DHRS3 可能是连接 NADPH 代谢与信号转导的关键节点,GCLM 则是衡量应激、决定铁死亡进展的潜在治疗靶点。
意义与展望
这项研究提供了视黄醇双相效应的系统层面分子注解,凸显了一个狭窄浓度窗口:细胞应答从适应性代谢优化转向细胞毒性损伤。对化妆品配方而言,与其遵循“浓度越高=功效越强”的传统假设,不如采纳数据驱动的低浓度策略,这与欧盟 2024 年视黄醇监管新规(EU 2024/996)的方向潜在一致。无论如何,这项工作为“为什么适量的 A 才是好 A"提供了迄今为止最为系统的分子答案。

